Blog · fauna del Perú · subgrupo
Gaviotas, gaviotines, skúas y aves playeras del Perú
Las gaviotas, los gaviotines, las skúas y las aves playeras comparten un orden, los Charadriiformes, y casi nada más: unas viven todo el año en las rocas de la costa peruana, otras llegan desde la tundra ártica y otras desde el sur del continente. La guía recoge treinta especies del grupo.
Publicado el

Qué es este grupo
Las skúas pertenecen a la familia Stercorariidae, dentro del orden Charadriiformes.1 Los ostreros forman la familia Haematopodidae, que tiene un solo género, Haematopus.2 Phalaropus fulicarius, aunque se clasifica como ave playera, se comporta en el mar como un ave marina que se alimenta de zooplancton en la superficie.3
Calidris minutilla es el más pequeño de los Calidris neárticos y pertenece a la familia Scolopacidae.45 Himantopus mexicanus pertenece a la familia Recurvirostridae.6 Las gaviotas y los gaviotines, como Larosterna inca, pertenecen a la familia Laridae.7
Residentes y viajeros: quién está y cuándo
Larosterna inca es residente: no hace migraciones regulares, aunque puede desplazarse detrás del alimento, sobre todo durante los episodios de El Niño.8 Larus belcheri vive todo el año en la costa del Perú.9 Su área se limita a la región de la corriente de Humboldt, del extremo sur de Ecuador al norte de Chile.10 Charadrius vociferus es residente y común a lo largo de la costa peruana.11 Larus dominicanus cría en el Pacífico hasta Piura.12
Himantopus mexicanus se reproduce desde los Estados Unidos, por el Caribe, México y Centroamérica, hasta Brasil y el Perú.6 En Lima se registró un nido en Pantanos de Villa, cerca de la laguna Sur.13 Sternula lorata, por su parte, anida en la costa del Perú y del norte de Chile.14 Tres aves del norte de Chile equipadas con geolocalizadores pasaron la época no reproductiva en distintos puntos de la costa peruana y volvieron a Mejillones en julio de 2016.15
Calidris pusilla cría en el Ártico, desde Alaska hacia el este, y pasa el periodo no reproductivo en Sudamérica; Paracas está en el borde sur de ese rango.16 De las aves de Sterna hirundo de colonias lacustres norteamericanas seguidas con geolocalizadores, el 70 % de las que se pudo identificar su sitio de invernada pasó el invierno boreal en el Perú.17 Seis aves de Sterna paradisaea marcadas en una colonia de Alaska bajaron por la costa del Pacífico y se detuvieron frente a Ecuador y el Perú.18 En el hemisferio occidental, la principal zona de invernada de Phalaropus lobatus es la corriente de Humboldt frente a Ecuador, el Perú y el norte de Chile.19
Desde el Ártico canadiense, la gran mayoría de las trayectorias de Xema sabini terminó frente a la costa del Perú.20 Desde el sur llegan otras: Stercorarius chilensis, que cría en el sur de Chile y Argentina, se dispersa hacia el norte fuera de la reproducción y en el Perú se considera visitante raro de la costa.2122 Leucophaeus modestus cría en el desierto de Atacama y fuera de la época reproductiva aparece a lo largo de la costa del Pacífico, de Ecuador al sur de Chile.23 El inventario de las aves de la orilla de San Andrés, en Pisco, la incluye entre las aves australes, que llegan a esas playas desde abril y se quedan hasta agosto o septiembre.24 Un ave de Stercorarius maccormicki, que cría en la Antártida, invernó frente al Perú según su registrador de luz.25
Gaviotines: del zarcillo al gaviotín peruano
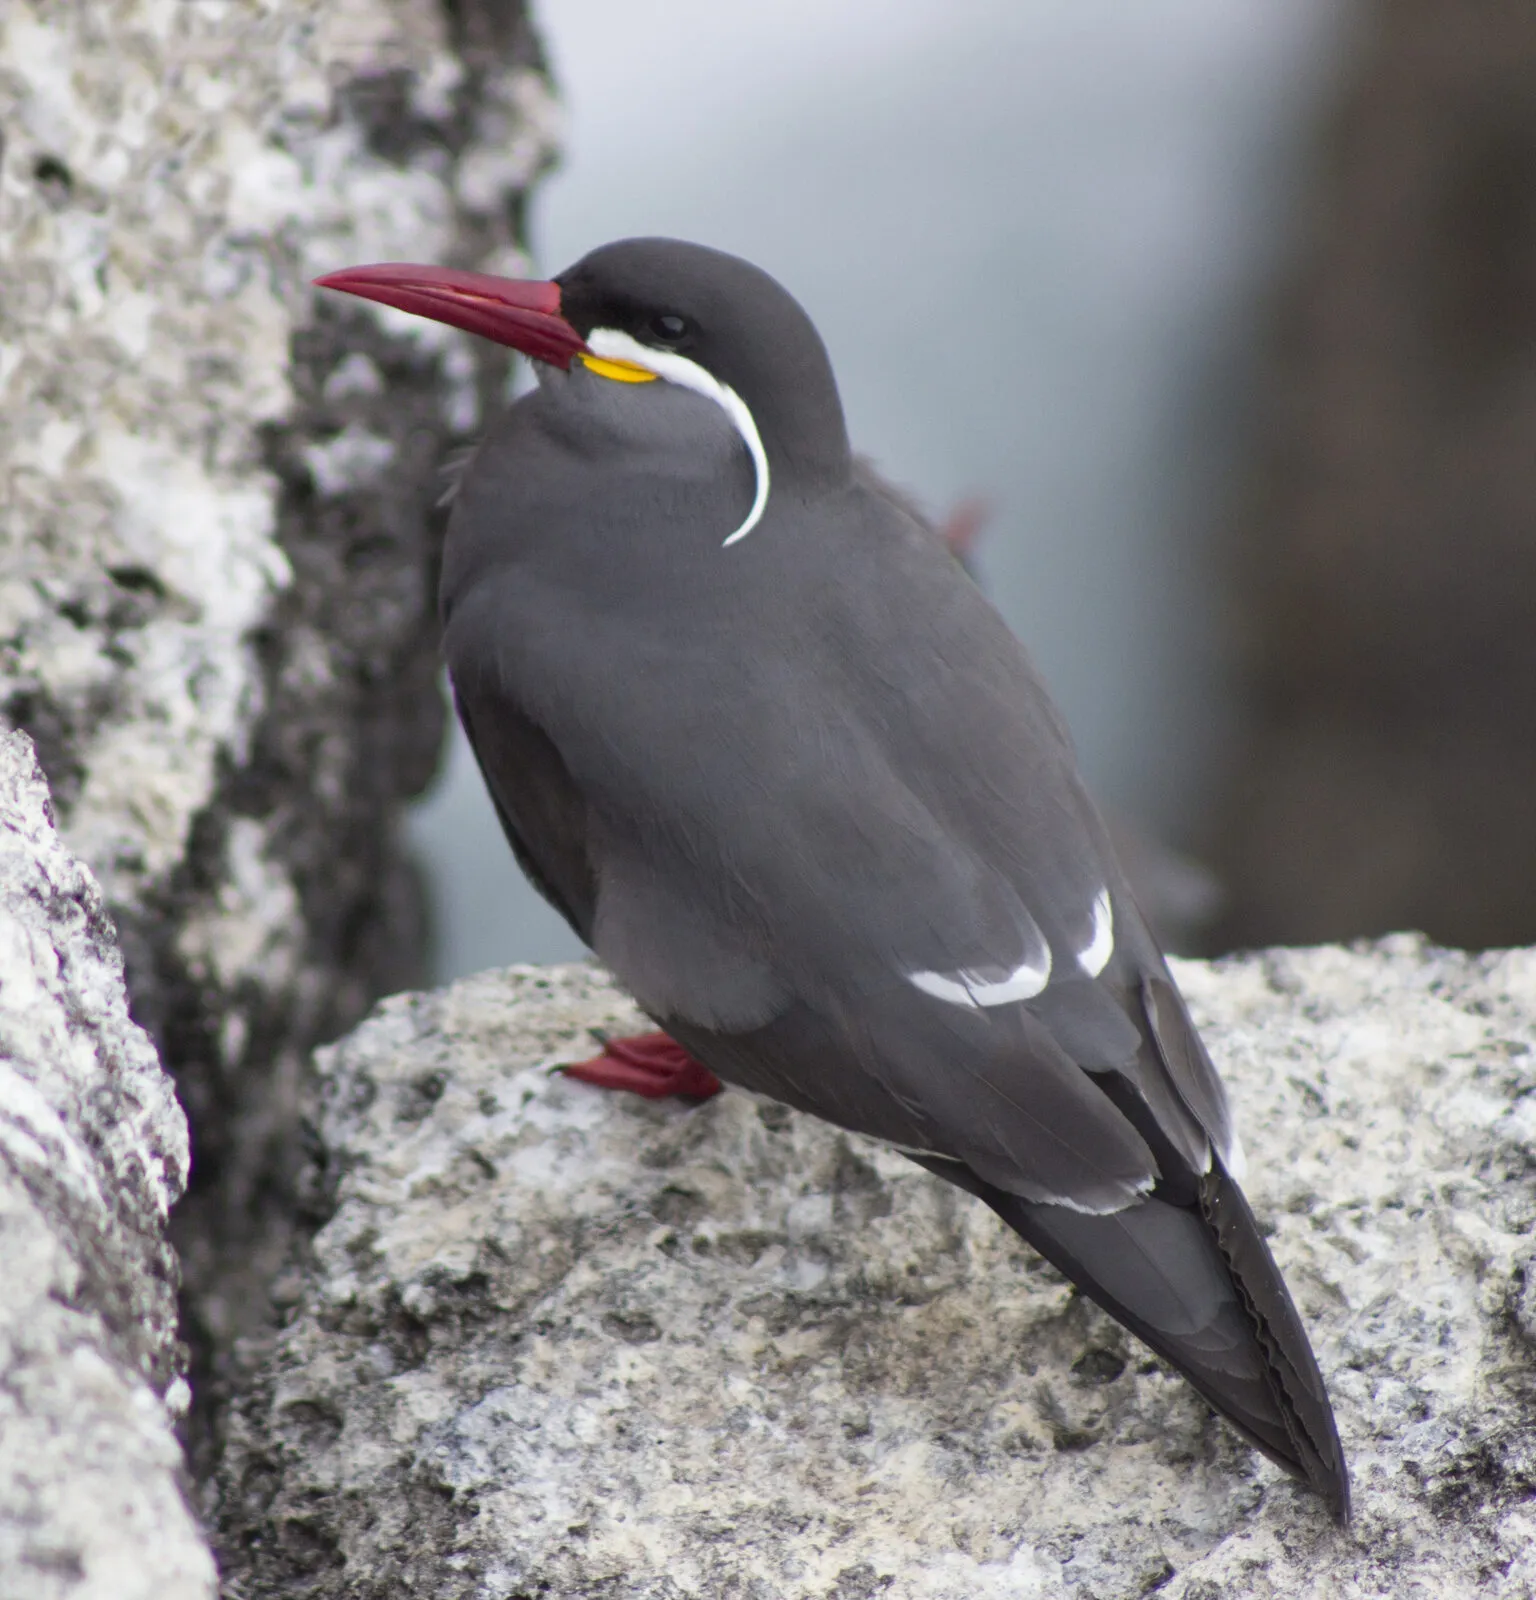
El zarcillo (Larosterna inca) es un gaviotín de cuerpo oscuro, con el pico rojo intenso, bigotes de plumas blancas y carúnculas amarillas en la comisura.8 En el Perú se le conoce como «zarcillo».26 Se ha registrado entre la isla Lobos de Tierra (6° 27′ S) y el puerto de Ilo (17° 31′ S).27 A diferencia de la mayoría de los gaviotines, que anidan en el suelo, cría dentro de grietas.28 La longitud del bigote blanco resultó el mejor indicador de la condición corporal en ambos sexos, y se relacionó con el resultado reproductivo de cada adulto.29
Sterna hirundinacea es un gaviotín de las costas sudamericanas: en el Atlántico vive de Brasil al cabo de Hornos, y en el Pacífico llega hasta Ecuador.30 La colonia más septentrional conocida de la costa pacífica sudamericana está en la isla Vieja, en el sur del Perú, a unos 14° S.31 Sus colonias principales en el Perú están en las islas de la Reserva Nacional de Paracas, aunque no existen estimaciones de población.30 A comienzos del siglo XX era muy común, sobre todo en la costa sur, y Coker halló sus principales sitios de cría en la isla San Gallán y en las islas Santa Rosa, en la bahía de Independencia.32
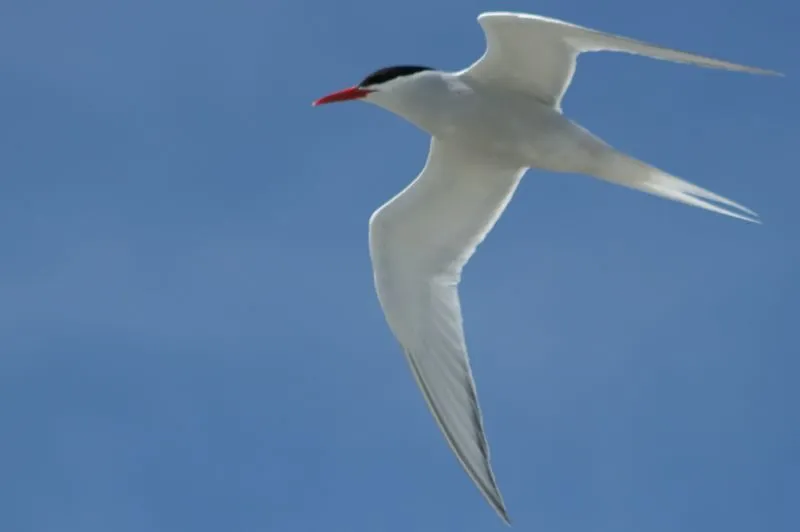

Sternula lorata es un ave de la corriente de Humboldt que, a diferencia de otras aves marinas, cría en el desierto costero.33 En Paracas sus nidos estaban entre 1 y 3,7 km del mar.33 Entre 2003 y 2008 se registró en 14 localidades de la costa peruana, desde el manglar de San Pedro de Vice (5° 31′ S) hasta los humedales de Ite (17° 56′ S), unos 2200 km.14 En el Perú se le llama «gaviotín peruano».34 Es uno de los gaviotines más pequeños, de unos 23 cm de largo total.14
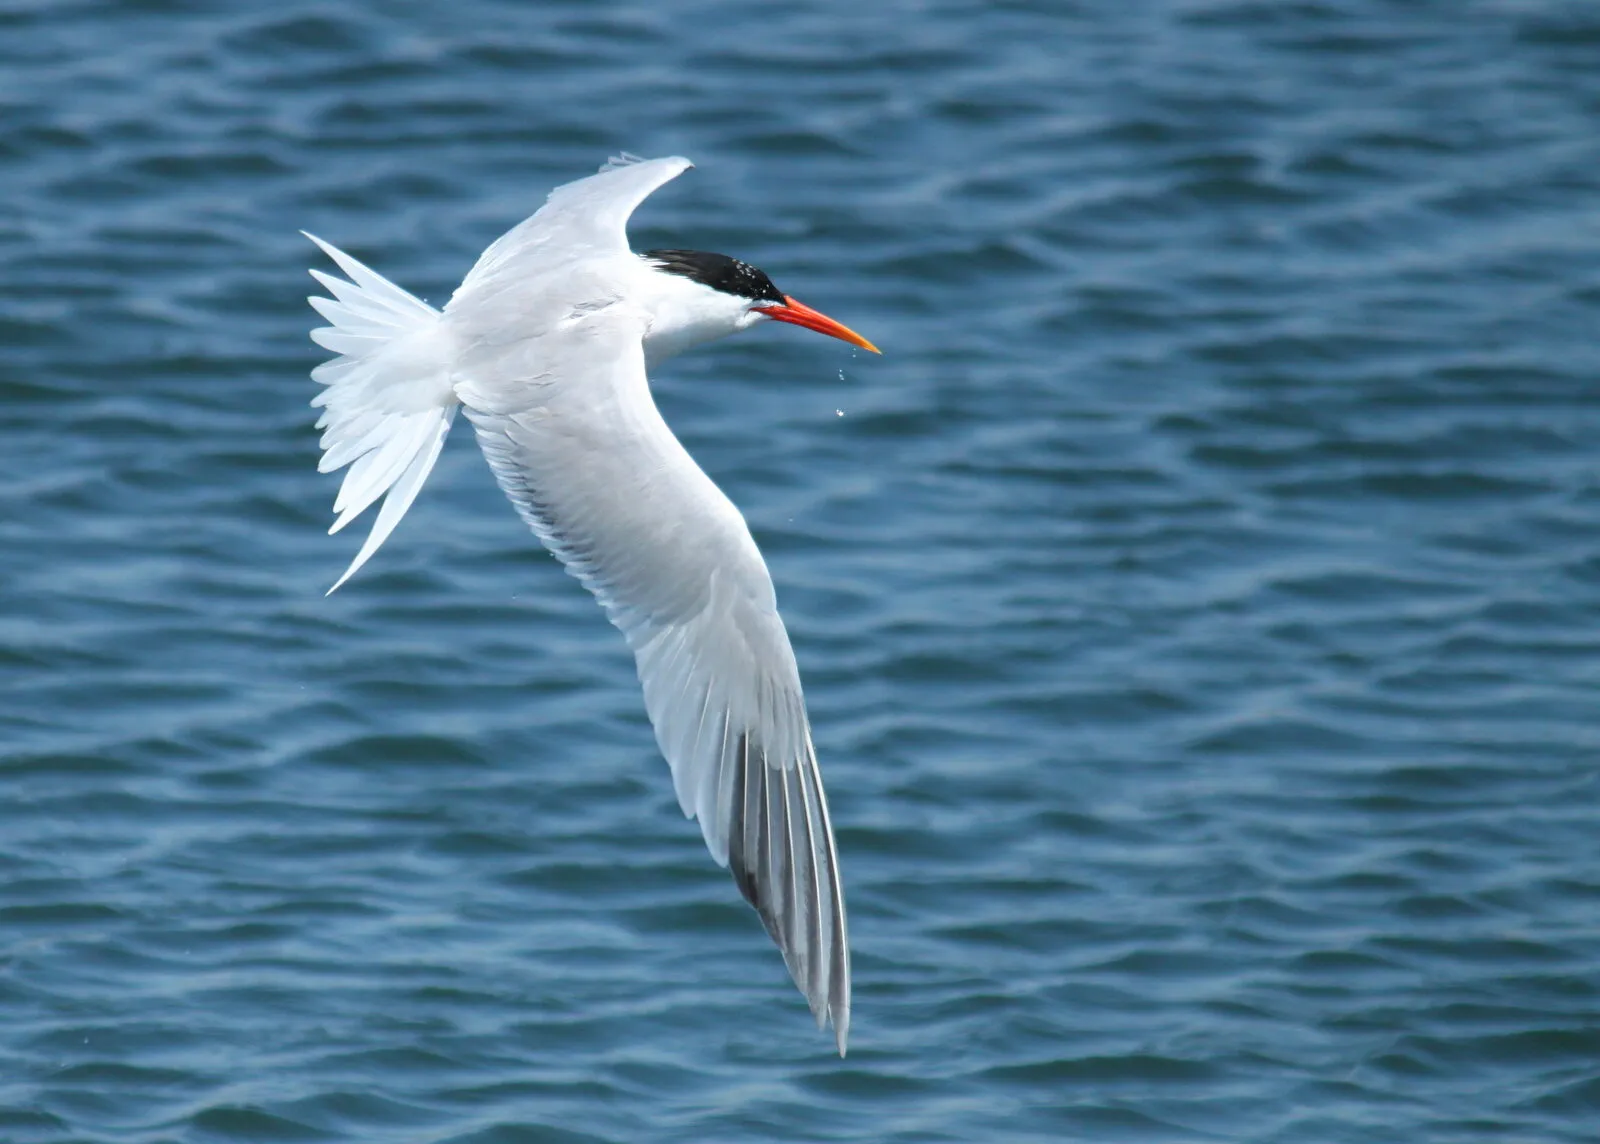
Thalasseus elegans cría en islas del norte del golfo de California y en unas pocas colonias del sur de California, y durante décadas se consideró que la isla Rasa albergaba más del 95 % de su población reproductora mundial.35 Tras la cría, la mayoría pasa el invierno boreal entre Ecuador y el norte de Chile.36 Thalasseus maximus no cría en el Perú: el plan maestro de la Reserva Nacional de Illescas lo cuenta entre las aves migratorias que visitan sus playas por temporadas.37 Las aves de las colonias del Atlántico medio de los Estados Unidos invernan a lo largo de la costa hasta el Perú.38 De Thalasseus sandvicensis lo que se sabe con detalle viene de Europa y el sur de África, no del Perú.39

Gaviotas: la costa, el desierto y la noche
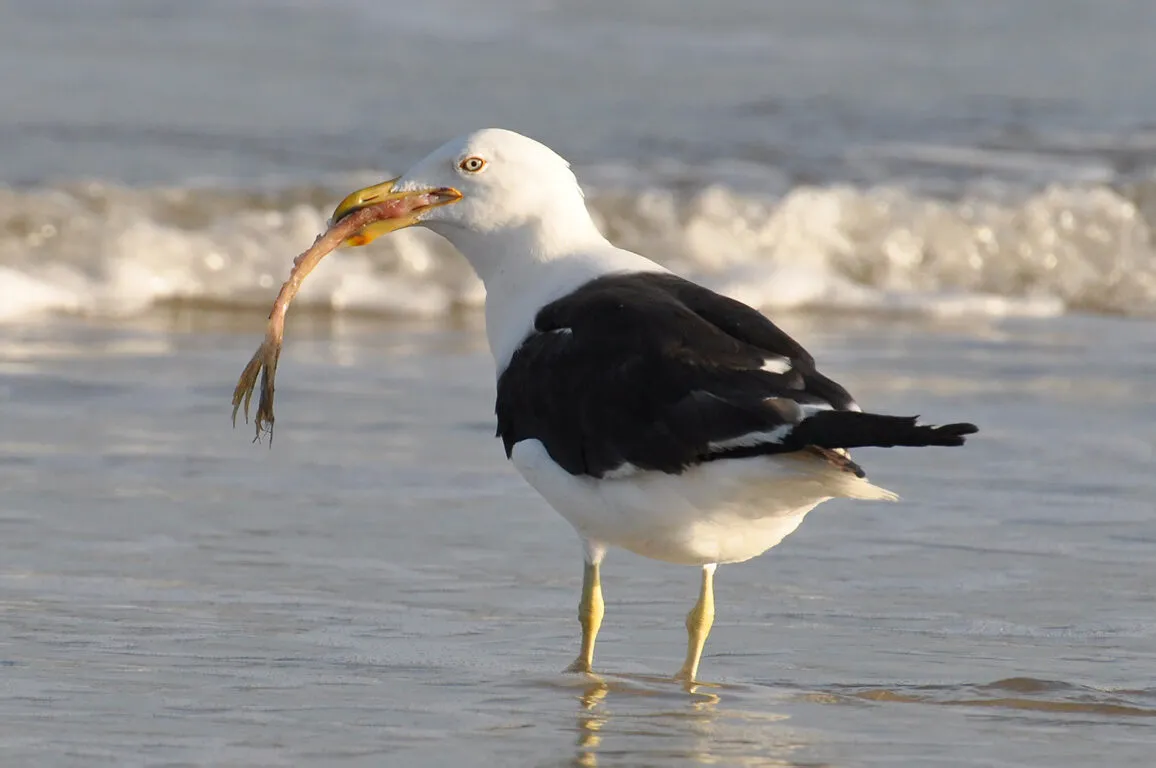
Larus belcheri es un ave costera que suele verse en ambientes rocosos, aunque se alimenta a varios kilómetros de la orilla.10 Es omnívora y carroñera: come peces, cangrejos, moluscos y animales muertos, y también depreda huevos y pichones de las aves guaneras.9 Entre las gaviotas de su región es la más inclinada a buscar entre las rocas, con la marea baja, presas protegidas por una concha o un caparazón duro.10 En la Reserva Nacional San Fernando, en Ica, se registró criando en dos islotes frente a la playa Punta Vera.27
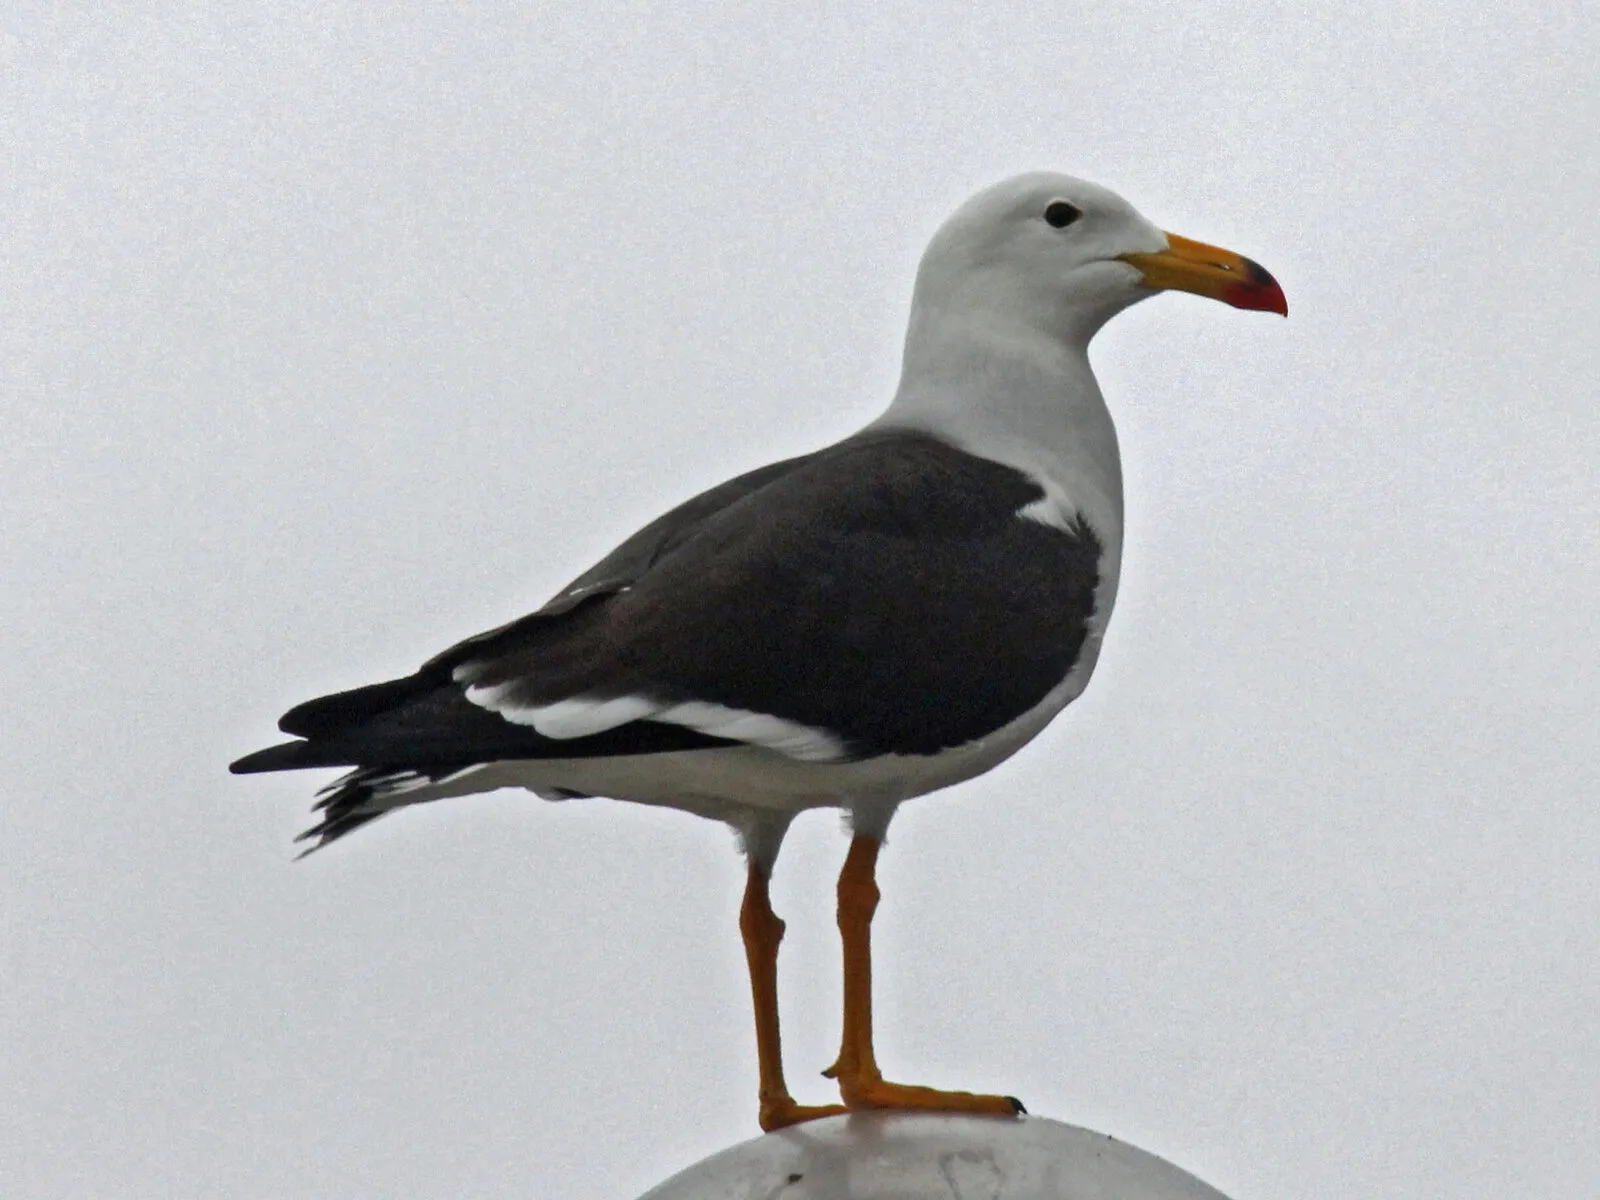

Larus dominicanus es la gran gaviota dominante del hemisferio sur, de dorso negruzco y patas amarillo verdosas, y se alimenta de una gama muy amplia de animales y aprovecha los basurales.40 En el norte del Perú forma colonias en islas como Foca, Lobos de Tierra y Lobos de Afuera.41 En esas tres islas la puesta parecía empezar hacia la tercera semana de octubre y la mayoría de los nidos tenía tres huevos.41 Una revisión de las poblaciones costeras sudamericanas estima la población reproductora en no menos de 160.000 parejas, y las colonias de más de mil parejas son raras.12

Leucophaeus modestus cría en el desierto de Atacama, a veces a decenas de kilómetros del mar, y vuela de noche a las aguas de la corriente de Humboldt para alimentarse.23 En un crucero de julio de 2010 frente a La Libertad, Áncash y el norte de Lima, que contó 25.001 aves de 23 especies, estuvo presente en cerca del 90 % del área recorrida.42 Leucophaeus pipixcan cría en marismas del interior de Norteamérica y pasa el invierno boreal en la costa pacífica de Sudamérica.43 Llega a las costas del Perú en octubre y noviembre.44 En la época no reproductiva ocupa la costa pacífica de Chile y el Perú, a menudo en densidades muy altas en las desembocaduras de los ríos.45
Creagrus furcatus es casi endémica de las islas Galápagos, donde están las colonias estudiadas.46 Es, según sus autores, la única gaviota que forrajea exclusivamente de noche: en 114 viajes seguidos con GPS, el 99,5 % del tiempo en el mar cayó en horas nocturnas.46
Aves playeras: ostreros, zancudos y playeros del Ártico
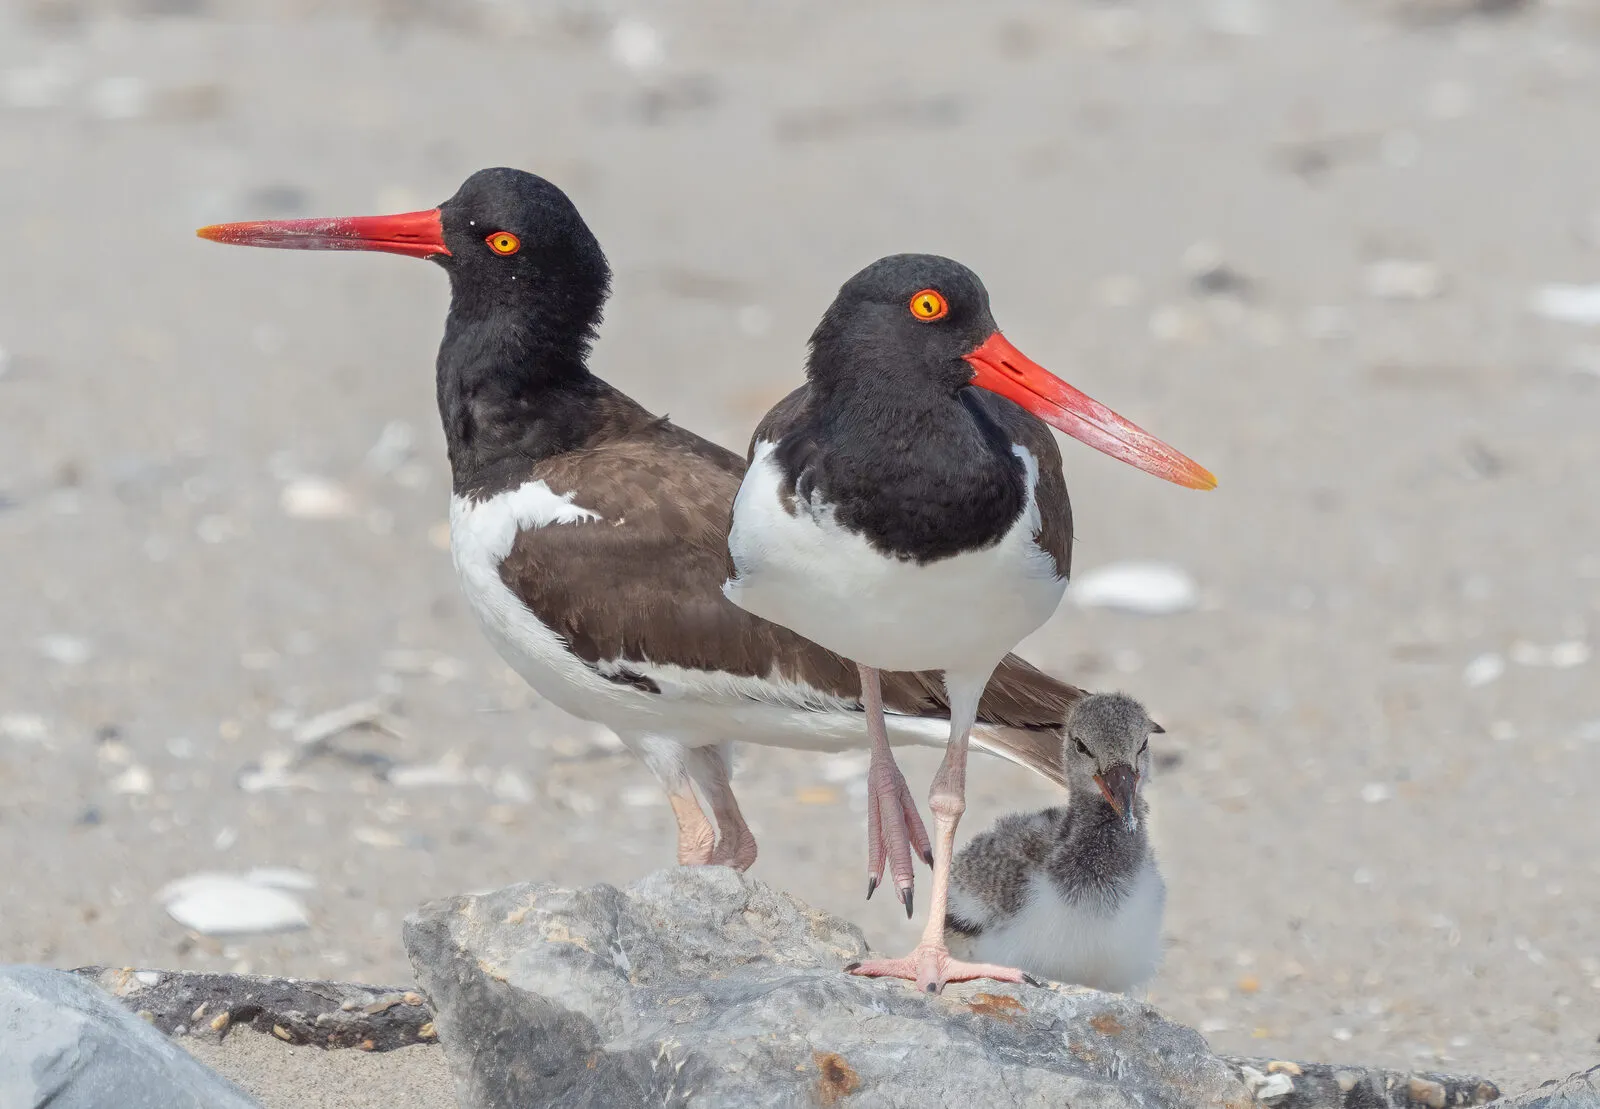
Haematopus palliatus está representado en el Pacífico sudamericano por la subespecie Haematopus palliatus pitanay, de Ecuador al sur de Chile.47 En Pantanos de Villa, en Lima, anida en la arena a menos de 50 m de la línea de la marea alta, y los ostreros en general toleran mal a las personas.48 En Lima y Callao la perturbación humana es una de las razones por las que hay pocos nidos en la costa.2

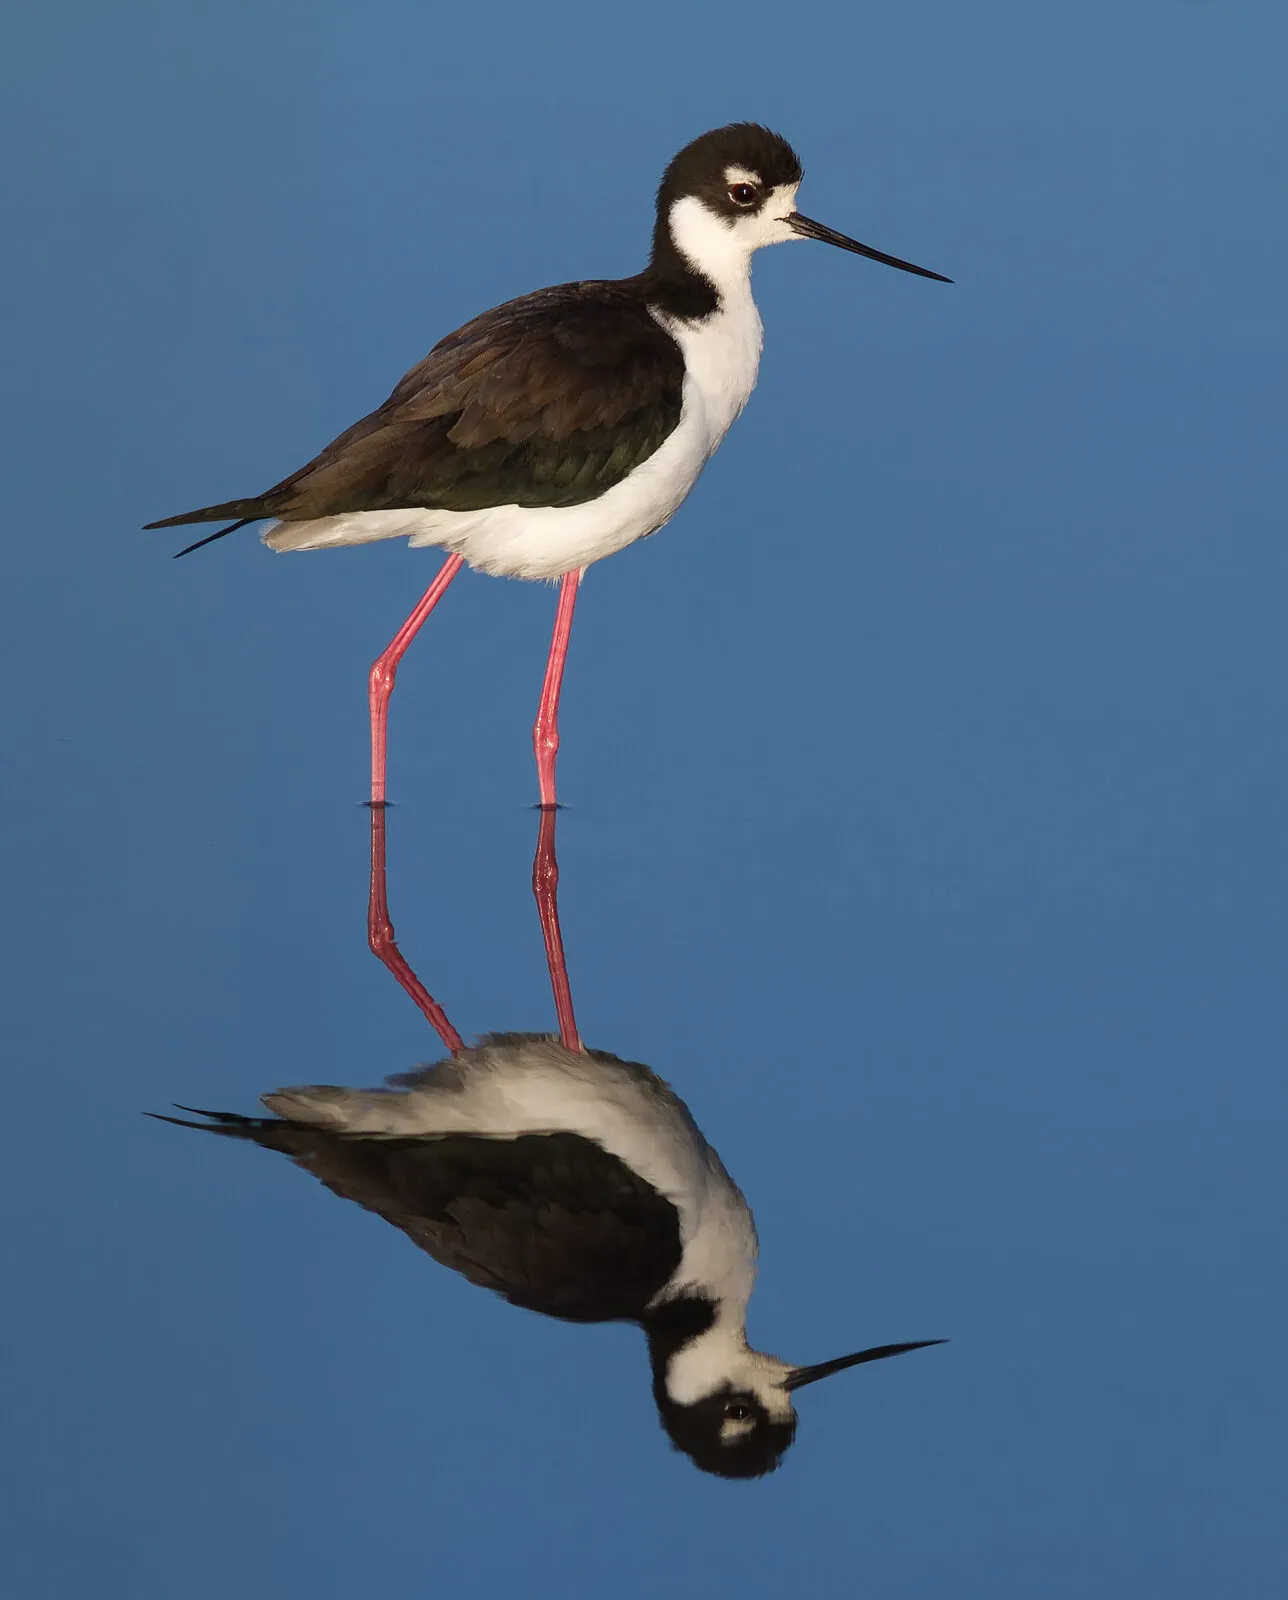
Un estudio peruano describe a Himantopus mexicanus como un ave de humedales, estuarios y otros cuerpos de agua naturales o artificiales.76 Los nidos de Pantanos de Villa suelen estar, según los autores, en zonas de alta salinidad y vegetación densa.13 Charadrius vociferus anida en el mismo humedal, en un pastizal de grama salada sobre suelo salino.13 Hasta 2015 se conocían solo dos sitios de cría del chorlito en el Perú, la laguna de Medio Mundo y Pantanos de Villa, y un registro en Huacho, a unos 11° S, añadió un tercero.11

Calidris alba cría en Alaska y el norte de Canadá y pasa el invierno por las costas del continente hasta el norte de Chile y Argentina; frecuenta sobre todo playas abiertas.37 En San Andrés, en Pisco, los migrantes neárticos llegan en el verano austral, entre septiembre y marzo.24 Calidris minutilla en invierno usa lagunas, marismas, bancos de lodo, cultivos inundados y marismas costeras.4 En el humedal de Caucato, en Pisco, la mayoría de las aves contadas estaba en la orilla de la laguna (91 de 164).49
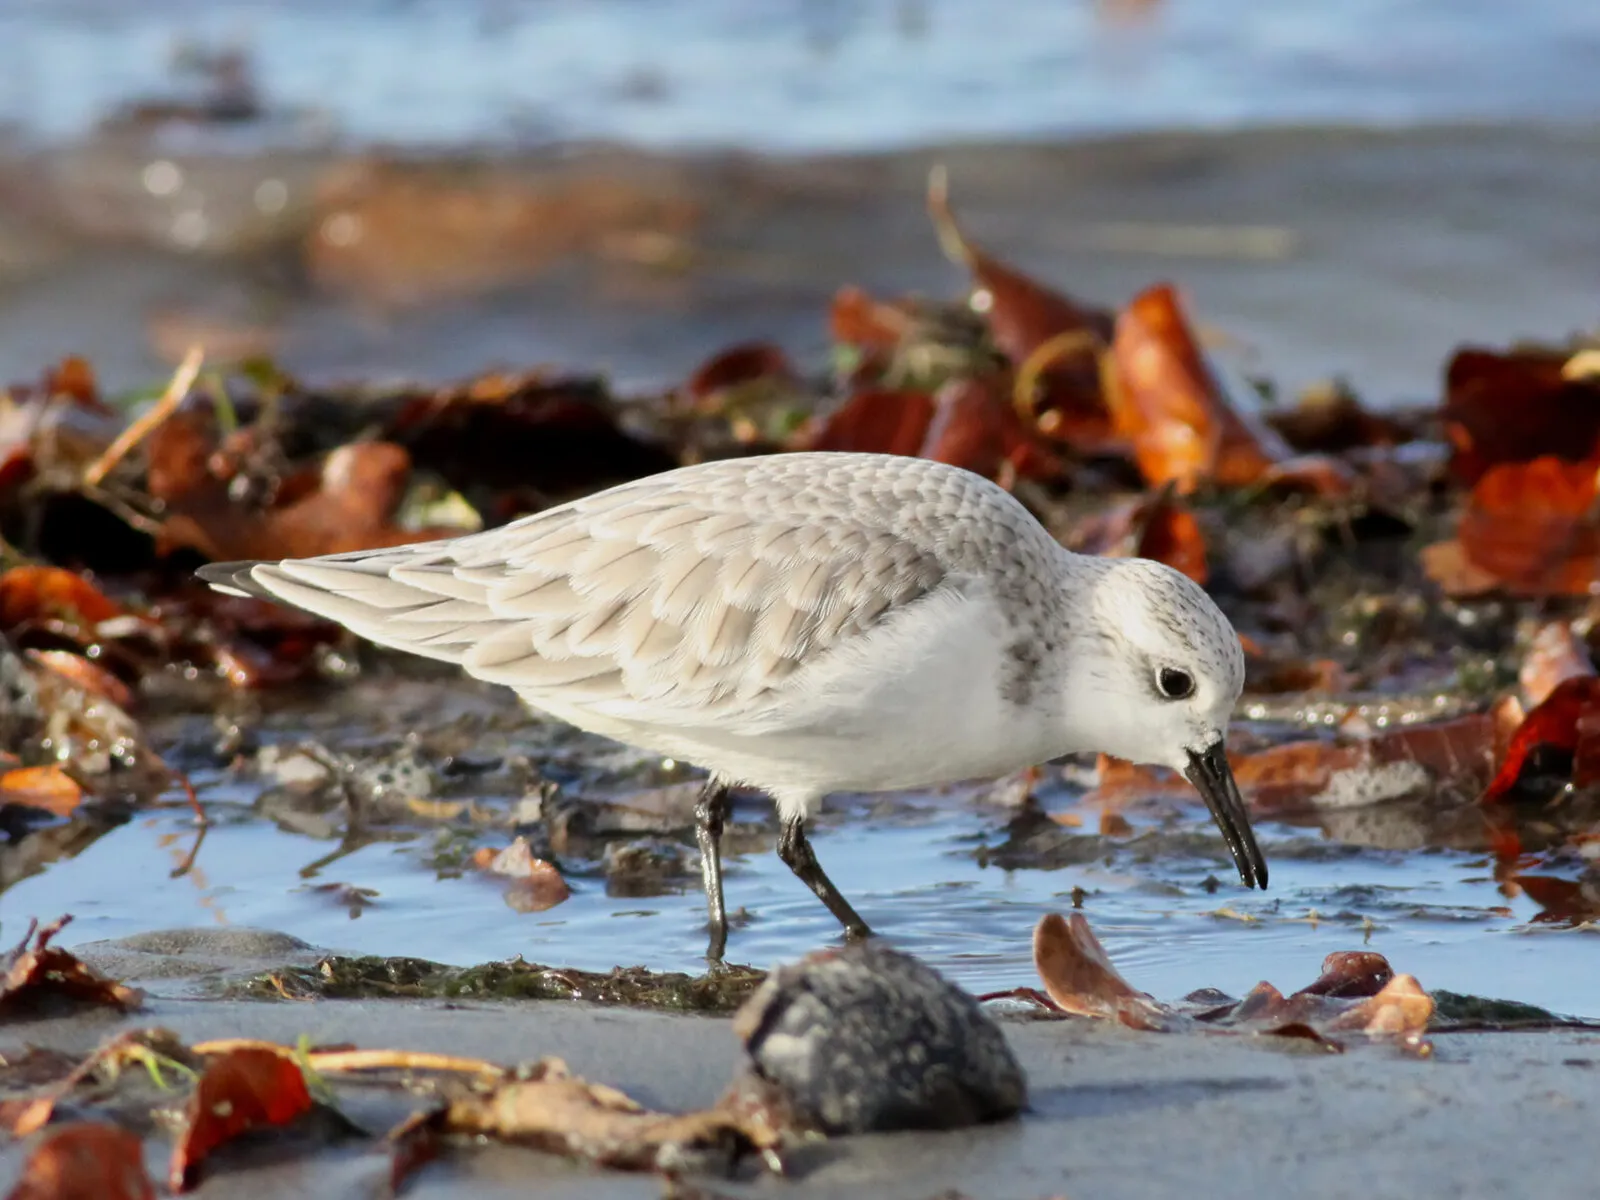

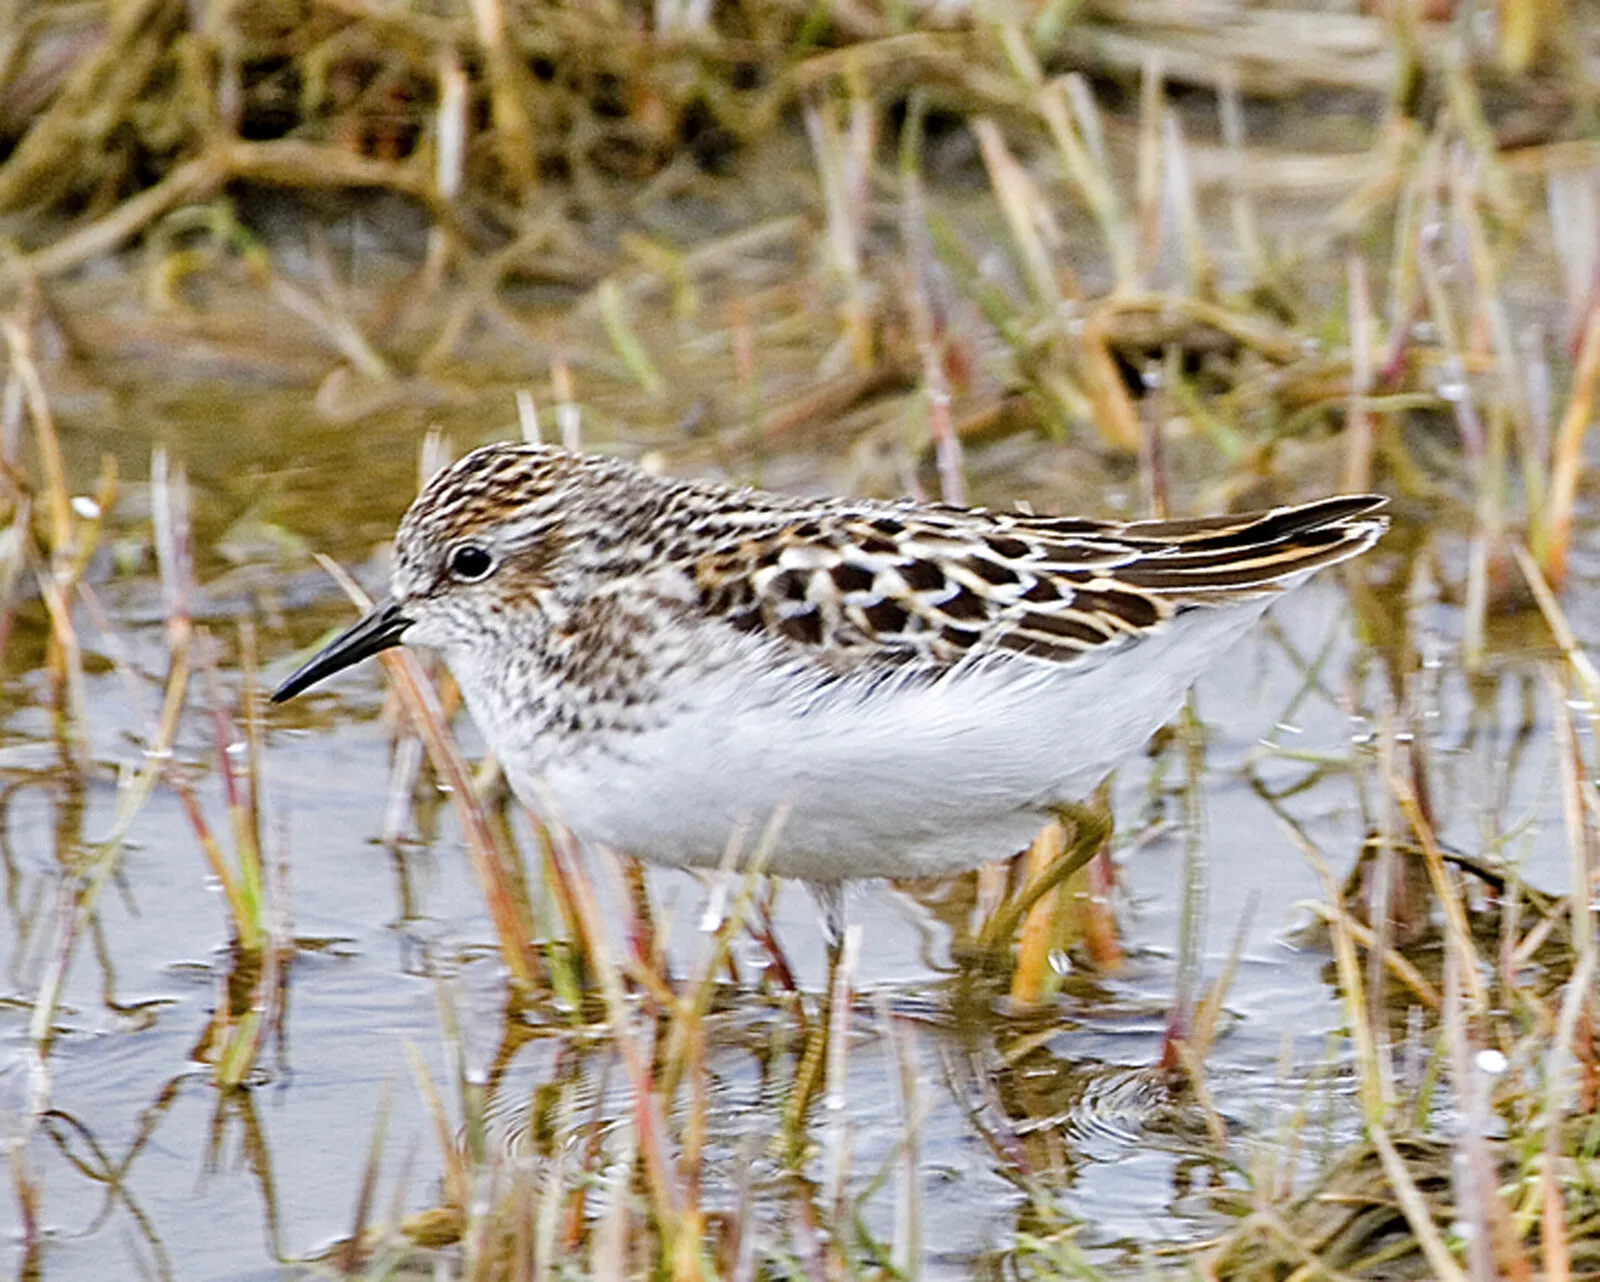

En Paracas varios miles de Calidris pusilla pasan allí el periodo no reproductivo, en un fango intermareal de unos 2 km de largo y 50 m de ancho rodeado de desierto costero.16 En el humedal de Caucato se contaron 222 individuos.49 Actitis macularius vive en el Perú a lo largo de la costa, en rocas, playas y humedales someros, y es común también lejos del mar, a orillas de pequeños ríos.50 Calidris bairdii figura como migrante neártico en las playas de San Andrés.24 Sobre Calidris melanotos hay un dato inusual: durante el verano ártico los machos compiten por las hembras con tanta intensidad que casi dejan de dormir.51
Skúas, falaropos y gaviotas del mar abierto
Stercorarius chilensis cría en la costa y las islas del centro-sur de Chile, incluido el cabo de Hornos, y en el sur de Argentina.21 Fuera de la cría ocupa la costa sudamericana entre el centro del Perú y el norte de Argentina.52 Se estima en unos 6000 individuos maduros.52 Roba comida a otras aves marinas.22
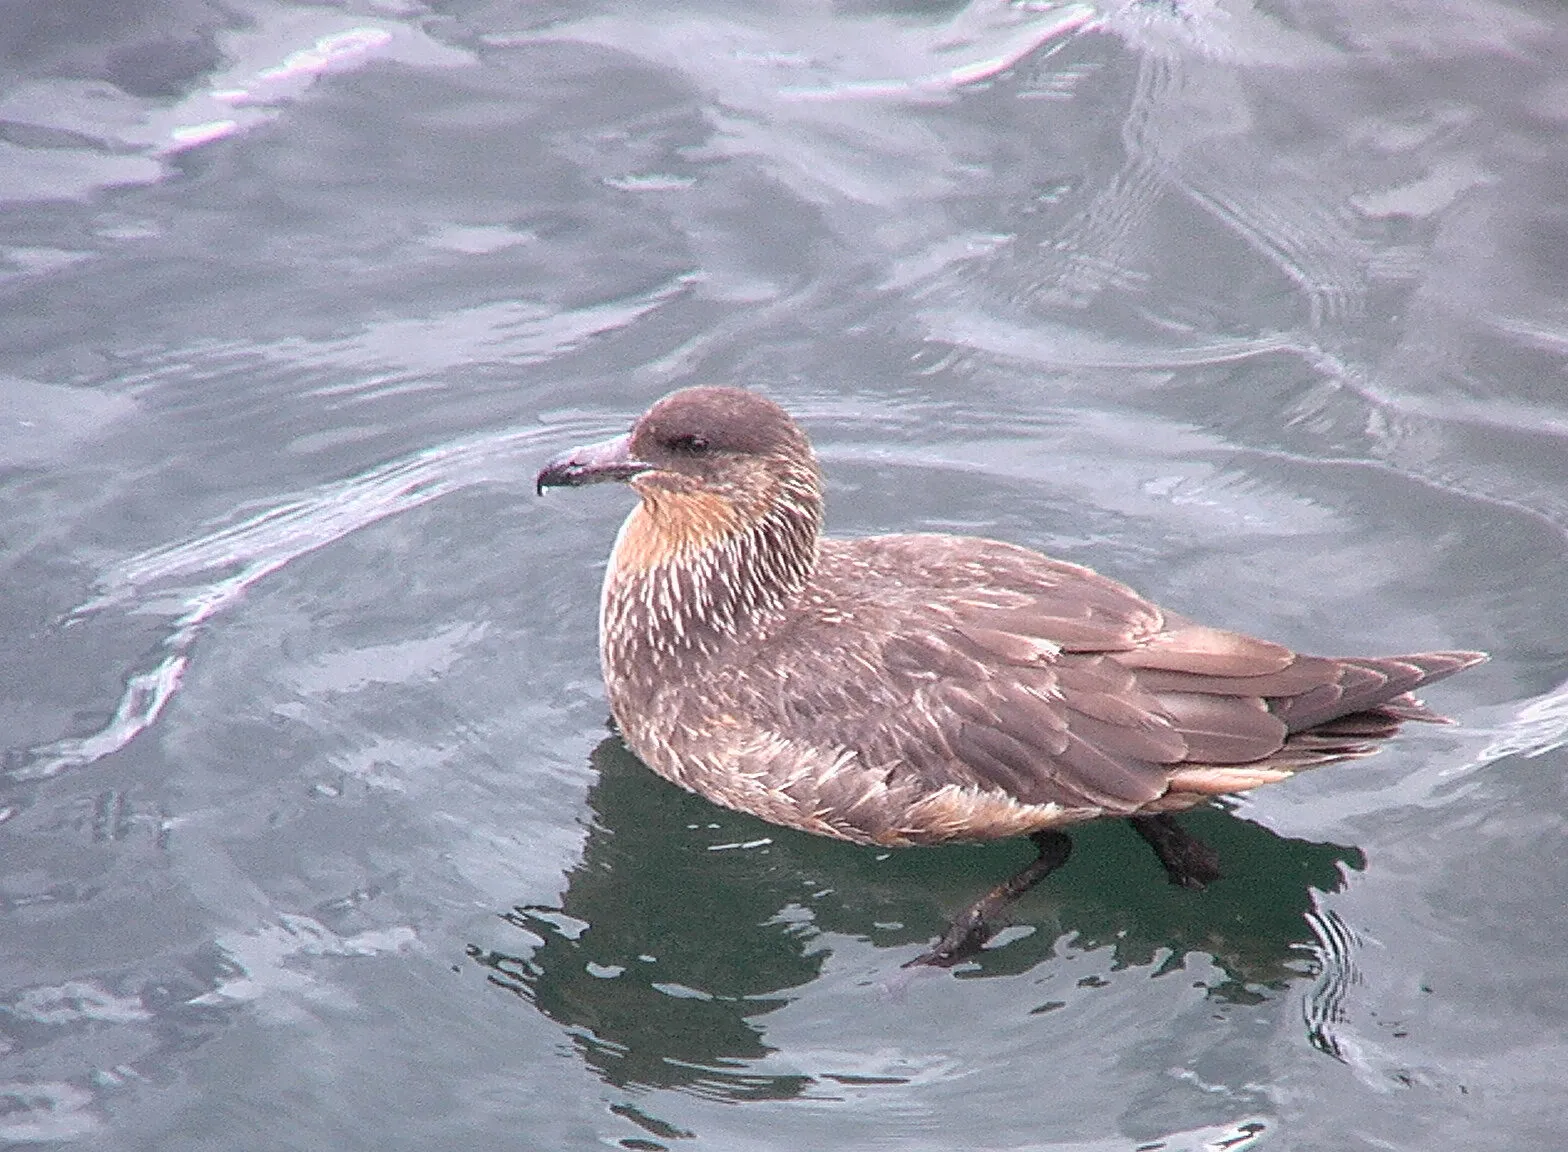

Stercorarius pomarinus cría en el Ártico y migra al sur durante el invierno boreal, del Perú al extremo sur de Chile y Argentina.1 Un ave de esa especie seguida por satélite desde el Ártico canadiense cruzó hacia el Pacífico occidental, pero es el resultado de un solo individuo.53 Stercorarius longicaudus cría en la tundra ártica, y casi todo lo que se sabe de sus rutas viene del Atlántico.54 Entre 1980 y 1995, en cruceros a menos de 370 km de la costa entre 3° S y 50° S, frente al Perú y Chile, se contaron 195 individuos de Stercorarius parasiticus y todos se clasificaron como migrantes que crían en el hemisferio norte.55 Stercorarius maccormicki, en cambio, cría en la Antártida y no en el hemisferio norte.25
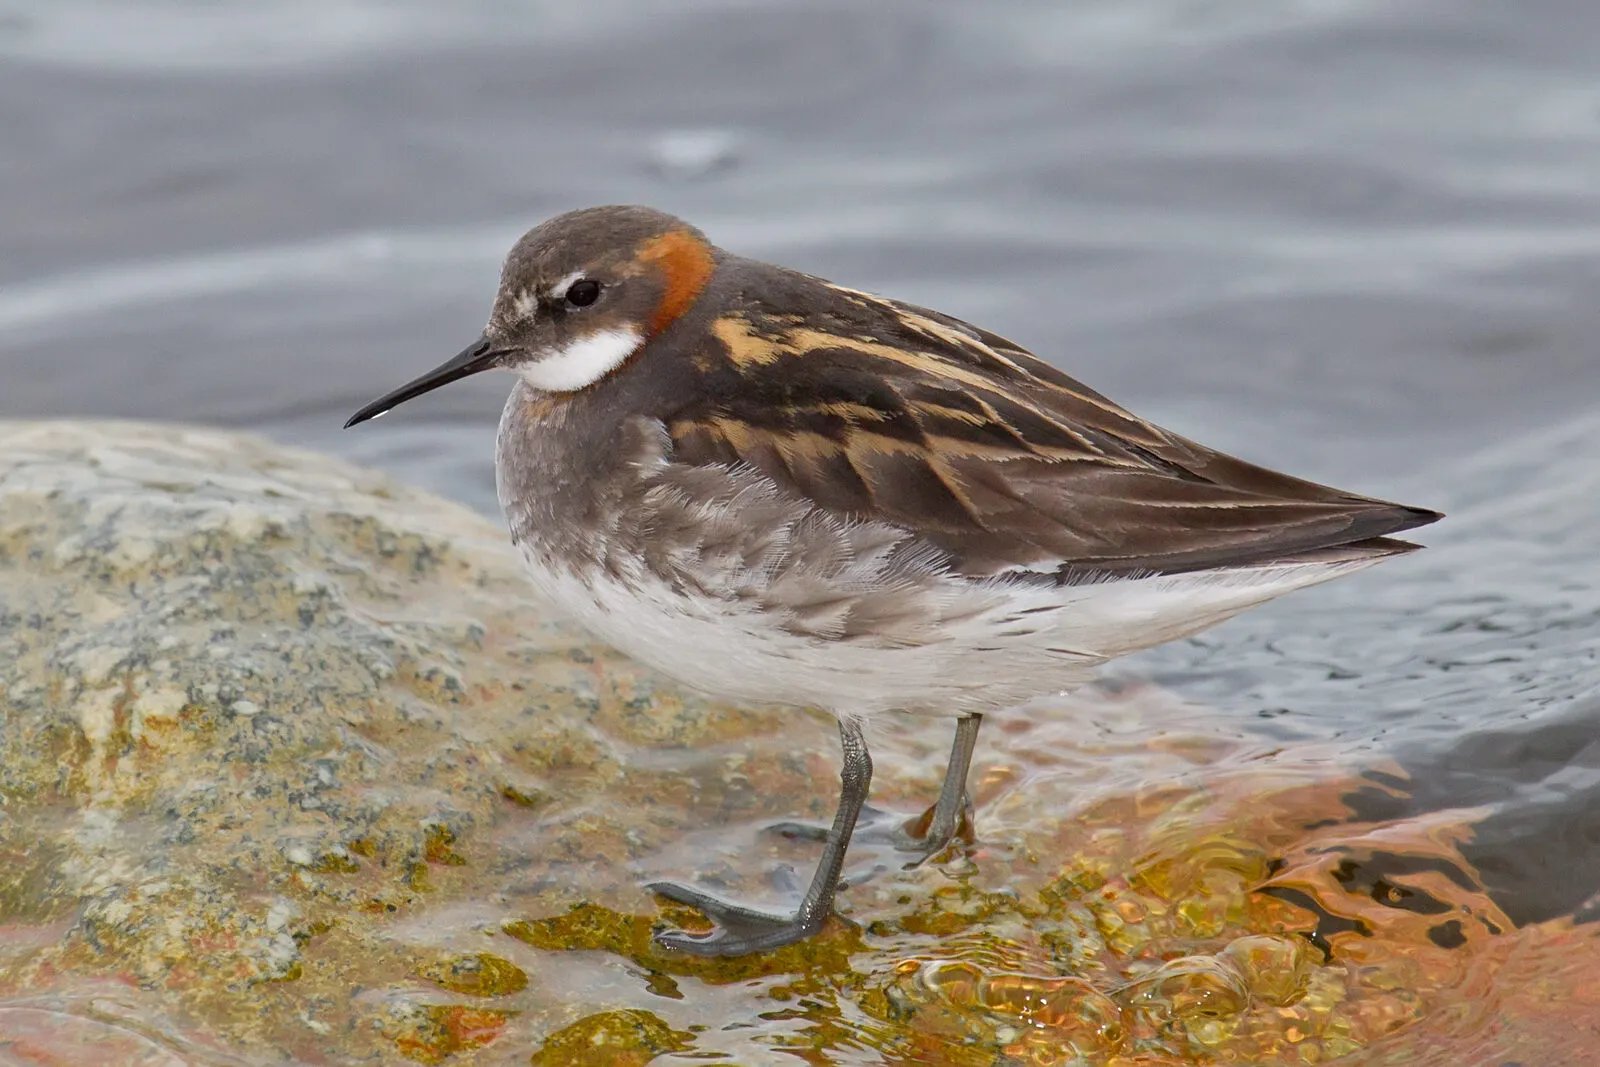
Phalaropus lobatus cría en charcas de agua dulce de la tundra y de ahí viaja al océano tropical; de 8 aves de la ruta occidental con trayectoria completa, 6 invernaron en el norte de la corriente de Humboldt.56 Phalaropus fulicarius cría en la tundra costera del Ártico y una parte de las aves norteamericanas pasa el invierno en el Pacífico, sobre todo frente al Perú y Chile.3 En el ambiente pelágico está a menudo lejos de la costa (por ejemplo, a 80–160 km) según estudios previos.3

Xema sabini tiene un área de cría fragmentada alrededor del Ártico y fuera de la reproducción es muy pelágica.20 Se presume que cada población reproductora llega a una de dos grandes zonas de afloramiento del hemisferio sur: la corriente de Humboldt frente al Perú o la de Benguela frente a Sudáfrica y Namibia.20 De 28 trayectorias que llegaron a un sitio de invernada, 26 fueron al Pacífico y 2 al Atlántico.20
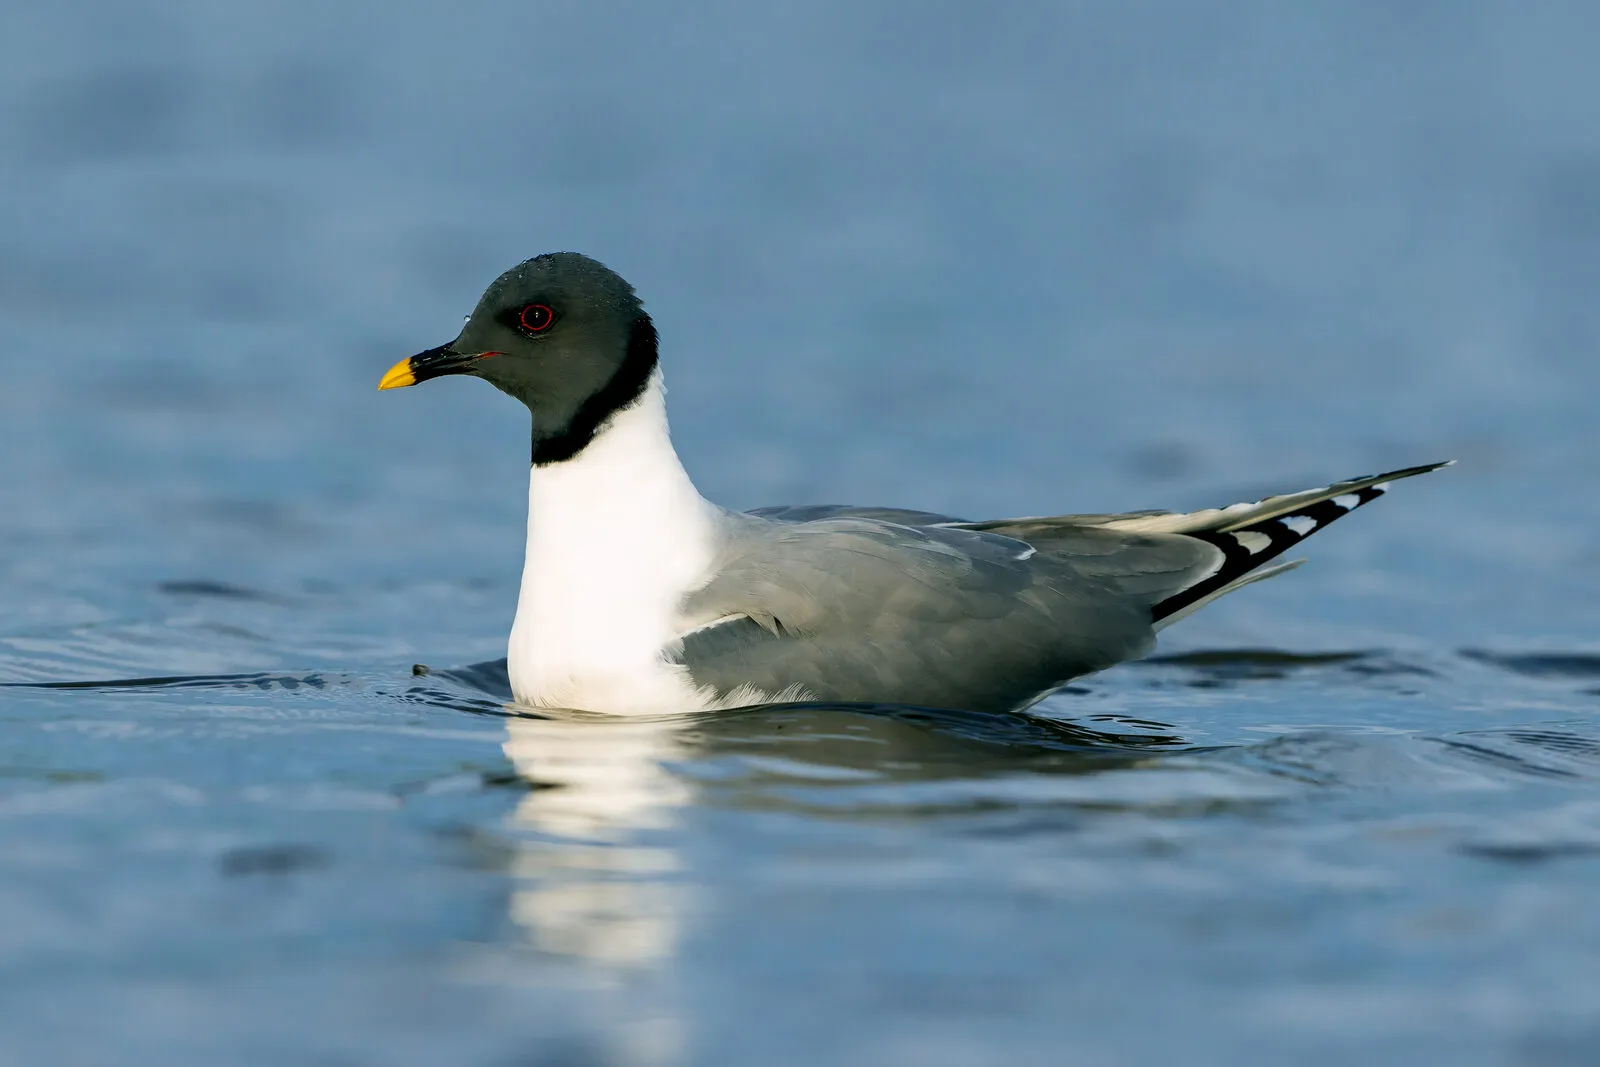

Cómo distinguirlas
En época de cría, el adulto de Sterna hirundinacea tiene el dorso gris pálido, que contrasta con una gorra negra, y el pico bermellón; fuera de la cría la frente y la corona se vuelven blancas y el pico oscuro o rojo apagado.57 Larosterna inca, en cambio, es oscuro, con bigotes blancos.8 Los jóvenes de esta especie tienen plumas pardas de bordes pálidos, pico oscuro y carúnculas oscuras pequeñas.8 Larus dominicanus es corpulenta y de dorso negruzco.40
El nido de Sternula lorata es una depresión simple y sin adornos, mientras que el del chorlo Charadrius alexandrinus, que cría en la misma zona, suele estar forrado de guijarros o fragmentos de concha.58 Charadrius vociferus es el mayor de los chorlitos de collar y el único con una doble banda en el pecho.11 Los huevos de Haematopus palliatus, color arena con pequeñas manchas oscuras, se confunden con el entorno.48
Actitis macularius se reconoce por el movimiento constante de la cola.50 Stercorarius pomarinus mide entre 48 y 58 cm y pesa unos 700 g.1 Leucophaeus pipixcan es una gaviota pequeña de capucha negra.43 Thalasseus elegans es más grande que su pariente Thalasseus acuflavidus, tiene la cresta más larga y un pico largo y grueso sin nada de negro.59
Comer y criar
Larosterna inca come sobre todo peces pequeños, por lo general anchoveta (Engraulis ringens), y también restos de la pesca, por lo que se acerca a las embarcaciones.8 Observadores a bordo de la flota cerquera industrial de anchoveta registraron depredadores tope en 12.778 lances entre 2015 y 2019: el zarcillo estuvo presente en el 26,69 % y fue el ave marina más avistada de todo el estudio.26 Los dos estómagos de Sterna hirundinacea que Coker examinó en el Perú contenían sobre todo peces pequeños, en particular anchoveta.32
En la bahía de Antofagasta, Haematopus palliatus se alimenta sobre todo de bancos del tunicado Pyura praeputialis, y cada ave comió en promedio 59 individuos durante una bajamar diurna.60 Fuera de la cría, Leucophaeus modestus parece especializarse, según los autores, en el cangrejo de la zona de rompiente Emerita analoga, que apareció en las 75 egagrópilas de tres sitios de Chile central sin restos de peces.23 Phalaropus fulicarius se alimenta en la superficie del mar de zooplancton, sobre todo de copépodos grandes.3 Creagrus furcatus come sobre todo el calamar Sthenoteuthis oualaniensis y peces clupeidos, que suben en la columna de agua de noche.61
En el mar, frente a la costa norte-central del Perú, se vio a un individuo de Leucophaeus modestus quitarle comida a un gaviotín de Sterna hirundinacea.42 En las islas del norte, Larus dominicanus se alimentaba a menudo de huevos y robaba comida a los piqueros de patas azules.41
En el Pacífico, Sterna hirundinacea parece criar de mayo a julio, con casos tardíos hasta agosto, en Ecuador, el Perú y el norte de Chile.30 Coker encontró colonias activas en pleno invierno, en San Gallán el 25 de junio y en las islas Santa Rosa el 18 de julio de 1907.32 En Pantanos de Villa, entre septiembre y octubre de 2020, se hallaron 24 huevos en 11 nidos de Haematopus palliatus, y solo el 20,83 % eclosionó.48 Entre las playeras hay inversión de papeles: en Actitis macularius las hembras compiten por territorios y por machos, a menudo toman más de una pareja y es el macho quien incuba.62
Estado de conservación y amenazas
Larosterna inca está Casi Amenazada según la UICN.63 Están en la misma categoría Calidris minutilla,64 Calidris pusilla,65 Charadrius vociferus66 y Thalasseus elegans.67 La lista oficial peruana de 2014 clasifica a Larosterna inca como Vulnerable y a Sternula lorata como En Peligro.68 A Sterna hirundinacea la sitúa En Peligro Crítico, aunque la UICN la considera de Preocupación Menor.6869
Para Sternula lorata en el Perú se han señalado el uso recreativo de las playas, los vehículos fuera de las pistas, la contaminación y el desvío de agua de los humedales, la conversión de pampas desérticas en cultivos y los perros y gatos asilvestrados.14 En Paracas, cinco nidos estaban a 30 m o menos de una pista.58 En Pantanos de Villa se registraron seis incendios entre 2006 y 2016, que los autores consideran un posible daño para el hábitat de Charadrius vociferus.13 En la Reserva Nacional San Fernando, en un año de monitoreo no se vio ninguna pareja de Larosterna inca con huevos o pichones, y los autores sugieren que el turismo y la recolección de algas pudieron hacer que dejara de criar allí.27
Entre noviembre de 2022 y enero de 2023, el brote de influenza aviar H5N1 dejó al menos 55.000 aves marinas muertas en playas e islas del Perú; un zarcillo juvenil hallado muerto en Villa El Salvador (Lima) dio positivo, la primera detección confirmada en la especie en el Perú.70 En Brasil, Sterna hirundinacea fue una de las aves más muestreadas en la vigilancia del virus, con 30 registros, de los cuales el 26,7 % fue positivo.71
En la Guayana Francesa, centro de la invernada de Calidris pusilla, la población invernante cayó cerca del 80 % entre 1980 y 2008-2010.72 Las parejas de Sterna hirundo de los Grandes Lagos bajaron cerca del 18 % entre 1976 y 2009, y como una gran parte invierna en una región pequeña, lo que ocurra allí podría afectar a varias colonias a la vez.17 En el Atlántico medio, la supervivencia de Thalasseus maximus de 0 a 2 años ha caído un 55 % desde la década de 1960.38 En 33 colonias de Escocia, la población de Stercorarius parasiticus disminuyó un 81 % entre 1992 y 2015.73 Un modelo para las marismas de la región de los Prairie Pothole proyecta para la década de 2040 una pérdida media de presencia del 96 % en Leucophaeus pipixcan.74
Lo que no se sabe
Sobre Sternula lorata, las 283 aves registradas entre 2003 y 2008 se contaron en un área de unas 1388 ha, apenas el 0,35 % del área apta para anidar en la costa peruana, de modo que esa cifra probablemente se queda corta.14 De Sterna hirundinacea en el Perú no existen estimaciones de población.30 Se cree que Stercorarius chilensis es estable, pero no hay evaluaciones sistemáticas de su tendencia.21
Calidris alba es de Preocupación Menor para la UICN, pero el plan maestro de la Reserva Nacional de Illescas afirma que su población podría estar sufriendo un descenso grave.37 En ese mismo plan, vecinos de la zona dijeron que la población fluctúa entre años.37 Para Calidris pusilla, los censos reproductores y las tendencias en sitios de escala indican un gran descenso, aunque una estimación de crecimiento basada en poblaciones del Ártico occidental no difiere significativamente de una población estable.72 De Leucophaeus pipixcan hay controversia sobre el nivel actual de la población y sobre una aparente disminución en unos 30 años.43
De Calidris bairdii no se conoce la tendencia de la población.75 Los autores de los estudios de seguimiento de Xema sabini no hacen recomendaciones de conservación específicas.20 Frente a la costa del Pacífico sudamericano se sabe poco de la ecología en el mar de varias skúas.22 Y de la revisión de las poblaciones costeras de Larus dominicanus se desprende que no hay evidencia sólida de que su área de cría se esté ampliando.12
Las especies de este artículo
- Larosterna inca
- Sternula lorata
- Sterna hirundinacea
- Calidris minutilla
- Thalasseus elegans
- Actitis macularius
- Larus belcheri
- Larus dominicanus
- Haematopus palliatus
- Charadrius vociferus
- Calidris alba
- Calidris pusilla
- Thalasseus maximus
- Thalasseus sandvicensis
- Himantopus mexicanus
- Sterna paradisaea
- Calidris melanotos
- Calidris bairdii
- Sterna hirundo
- Stercorarius chilensis
- Creagrus furcatus
- Stercorarius pomarinus
- Phalaropus fulicarius
- Phalaropus lobatus
- Xema sabini
- Leucophaeus modestus
- Stercorarius longicaudus
- Stercorarius parasiticus
- Stercorarius maccormicki
- Larus pipixcan
Fuentes (76)
- Soto, R., Ruiz R., V.H. & Vega-Roman, E. (2012). Estado actual del conocimiento de la familia Stercorariidae en el extremo sur de Chile. Anales del Instituto de la Patagonia, 83-93. doi.org
- Podestá, J. & Barona, D. (2025). Primer registro reproductivo de Haematopus palliatus (Temminck, 1820) en la zona sur del distrito de la Punta, Callao. South Sustainability, e123. doi.org
- Saalfeld, S.T. et al. (2024). From land to sea: the fall migration of the red phalarope through the Western Hemisphere. Marine Ecology Progress Series 729, 1-29. doi.org
- Cifuentes-Sarmiento, Y. & Renjifo, L.M. (2016). Dieta del correlimos diminuto (Calidris minutilla) en cultivos de arroz orgánico de Colombia. Ornitología Neotropical, 89-96. doi.org
- WoRMS Editorial Board (2026). Calidris minutilla (Vieillot, 1819). World Register of Marine Species. marinespecies.org
- WoRMS Editorial Board (2026). Himantopus mexicanus (Müller, 1776). World Register of Marine Species. marinespecies.org
- WoRMS Editorial Board (2026). Larosterna inca (Lesson, 1827). World Register of Marine Species. marinespecies.org
- VanderWerf, E.A. (2022). An Inca Tern in the Hawaiian Islands: first record for Hawaii and the United States. Western Birds, 208-215. doi.org
- Gomez-Puerta, L.A. & Naupay, A. (2019). Algunos helmintos parásitos de la gaviota peruana (Larus belcheri). Revista Peruana de Biología, 149-156. doi.org
- Burger, J. et al. (2024). Belcher's Gull (Larus belcheri). Birds of the World, version 1.1. doi.org
- Chávez-Villavicencio, C. et al. (2015). Registro de actividad reproductiva de Charadrius vociferus (Linnaeus 1758, chorlo gritón) en el humedal de Paraíso, Huacho (Lima – Perú). The Biologist (Lima), 443-445. doi.org
- Yorio, P. et al. (2016). Distribution and Trends in Kelp Gull (Larus dominicanus) Coastal Breeding Populations in South America. Waterbirds, 114-135. doi.org
- Amaro, L. & Goyoneche, G. (2017). Anidación de aves en el Refugio de Vida Silvestre Los Pantanos de Villa 2007-2009, Lima-Perú. The Biologist (Lima), 155-171. doi.org
- Zavalaga, C.B. et al. (2009). Current status of Peruvian Terns Sternula lorata in Perú: threats, conservation and research priorities. Bird Conservation International, 175-186. doi.org
- Ryan, T.P. et al. (2022). Movements and Asynchronous Nesting of the Peruvian Tern Sternula lorata in Chile and Peru. Marine Ornithology, 63-69. doi.org
- Tavera, E.A. et al. (2020). Oversummering juvenile and adult Semipalmated sandpipers in Perú gain enough survival to compensate for foregone breeding opportunity. Movement Ecology, 42. doi.org
- Bracey, A.M. et al. (2018). Migratory routes and wintering locations of declining inland North American Common Terns. The Auk, 385-399. doi.org
- McKnight, A. et al. (2013). ‘Stepping stone’ pattern in Pacific Arctic tern migration reveals the importance of upwelling areas. Marine Ecology Progress Series, 253-264. doi.org
- Hunnewell, R.W., Diamond, A.W. & Brown, S.C. (2016). Estimating the migratory stopover abundance of phalaropes in the outer Bay of Fundy, Canada. Avian Conservation and Ecology, 11. doi.org
- Davis, S.E., Maftei, M. & Mallory, M.L. (2016). Migratory Connectivity at High Latitudes: Sabine's Gulls (Xema sabini) from a Colony in the Canadian High Arctic Migrate to Different Oceans. PLoS ONE 11(12): e0166043, e0166043. doi.org
- Seco Pon, J.P. et al. (2017). Asociación de la Escúa Parda (Stercorarius antarcticus) y la Escúa Común (Stercorarius chilensis) con operaciones de pesca en el Mar Argentino. El Hornero, 205-214. doi.org
- Simeone, A., Anguita, C. & Luna-Jorquera, G. (2014). At-sea abundance and distribution of skuas and jaegers (Charadriiformes: Stercorariidae) at coastal waters off central Chile. Revista Chilena de Historia Natural, 87:6. doi.org
- Rivera, J. & Thomson, R.F. (2026). From generalist to specialist? Diet shift in the Gray Gull (Leucophaeus modestus) outside its Atacama breeding range. Journal of Field Ornithology 97(3), 6. doi.org
- Pulido-Capurro, V. (2025). Las aves de la orilla marina de San Andrés, Pisco, Ica. The Biologist (Lima), 55-70. doi.org
- Kopp, M. et al. (2011). South polar skuas from a single breeding population overwinter in different oceans though show similar migration patterns. Marine Ecology Progress Series, 435:263-267. doi.org
- Rivadeneyra-Villafuerte, S. & Román-Amancio, G. (2022). Depredadores tope en la pesquería industrial de anchoveta entre los años 2015 y 2019. Boletín Instituto del Mar del Perú, 91-112. doi.org
- Meza, M.A., Llapapasca Lloclla, M. & Romero, C. (2021). Avifauna de algunas playas de la Reserva Nacional de San Fernando (RNSF) Ica – Perú. Junio 2018 - Mayo 2019. Boletín Instituto del Mar del Perú, 29-44. doi.org
- Velando, A. & Márquez, J.C. (2002). Predation risk and nest-site selection in the Inca tern. Canadian Journal of Zoology, 1117-1123. doi.org
- Velando, A., Lessells, C.M. & Márquez, J.C. (2001). The function of female and male ornaments in the Inca Tern: evidence for links between ornament expression and both adult condition and reproductive performance. Journal of Avian Biology, 311-318. doi.org
- Jaime Cursach Valenzuela, Vilugrón, J. & Rau, J.R. (2021). Nidificación del gaviotín sudamericano (Sterna hirundinacea) en islas Caicura (41° S), Seno de Reloncaví, sur de Chile. Anales del Instituto de la Patagonia, 49:6. doi.org
- Portflitt-Toro, M. et al. (2018). Breeding of the South American Tern (Sterna hirundinacea) on anchored boats in Coquimbo, northern Chile. Ornitología Neotropical, 187-191. doi.org
- Coker, R.E. (1919). Habits and economic relations of the guano birds of Peru. Proceedings of the United States National Museum, 449-511. doi.org
- Amorós Kohn, S., Saravia Guevara, P. & Williams, M. (2010). Biología reproductiva de Sternula lorata, «gaviotín peruano», en la reserva nacional de paracas (rnp), ica – perú. Ecología Aplicada, 125-132. doi.org
- Servicio Nacional de Áreas Naturales Protegidas por el Estado (2025). Plan Maestro de la Reserva Nacional de Paracas 2025-2030. SERNANP, RPE N.° 000173-2025-SERNANP/PE. cdn.www.gob.pe
- Velarde, E. et al. (2015). Warm oceanographic anomalies and fishing pressure drive seabird nesting north. Science Advances, e1400210. doi.org
- Veit, R.R. et al. (2021). Population Growth and Long-Distance Vagrancy Leads to Colonization of Europe by Elegant Terns Thalasseus elegans. Frontiers in Ecology and Evolution, 725614. doi.org
- Servicio Nacional de Áreas Naturales Protegidas por el Estado (2024). Plan Maestro de la Reserva Nacional Illescas 2024-2028. SERNANP, aprobado por Resolución Presidencial N.° 000025-2024-SERNANP. cdn.www.gob.pe
- Weithman, C. et al. (2025). Movements of post-breeding royal terns (Thalasseus maximus) in Virginia, U.S.A. PeerJ, e19898. doi.org
- Tree, A.J. (2011). Origins, Occurrence and Movements of Sandwich Tern Thalasseus Sandvicensis in Southern Africa. Marine Ornithology, 173-181. doi.org
- Burger, J. et al. (2025). Kelp Gull (Larus dominicanus). Birds of the World, version 1.2. doi.org
- Figueroa, J. (2010). Aspectos de la biología reproductiva de la gaviota dominicana Larus dominicanus (Charadriiformes, Laridae) en tres islas del norte del Perú. The Biologist (Lima), 189-211. doi.org
- Figueroa, J. & Suazo, E. (2012). Distribución de las aves marinas frente a la costa norte-centro del Perú en el invierno de 2010 y su interacción potencial con la pesquería. The Biologist (Lima), 41-71. doi.org
- Burger, J. & Gochfeld, M. (2020). Franklin's Gull (Leucophaeus pipixcan). Birds of the World. doi.org
- Acuña-Ruz, M.P. et al. (2026). Ocean Chlorophyll-a Concentration and the Extension of the Migration of Franklin’s Gulls (Leucophaeus pipixcan) in Southern South America. Animals. doi.org
- Bonnedahl, J., Stedt, J. & Waldenström, J. (2015). Comparison of Extended-Spectrum β-Lactamase (ESBL) CTX-M Genotypes in Franklin Gulls from Canada and Chile. PLOS ONE. doi.org
- Cruz, S.M. et al. (2025). The owl gull: Exclusively nocturnal foraging by the Swallow-tailed Gull Creagrus furcatus in Galápagos. Marine Ornithology 53(1), 63-69. doi.org
- Thomson, R.F. et al. (2025). Population trends and vital rates for the American Oystercatcher (Haematopus palliatus pitanay) in Central Chile. Journal of Field Ornithology. doi.org
- Arenas, A. et al. (2020). Reproductive success of Haematopus palliatus, the Common oystercatcher, and anthropic activities in the Marvilla Circuit, Pantanos de Villa, Lima- Peru. South Sustainability, e020. doi.org
- Pisconte-Vilca, J.A. et al. (2020). Variación de la abundancia y diversidad de las aves migratorias en el humedal de Caucato, Pisco Perú. Ñawparisun - Revista de Investigación Científica, 103-110. doi.org
- Senner, N.R. & Angulo Pratolongo, F. (2014). Atlas de las aves playeras del Perú. Sitios importantes para su conservación. Ministerio del Ambiente y CORBIDI, Lima, 96. sinia.minam.gob.pe
- Santema, P. et al. (2023). Sexual selection for extreme physical performance in a polygynous bird is associated with exceptional sex differences in oxygen carrying capacity. Biology Letters, 20230391. doi.org
- Tavares, D.C. et al. (2012). Aves, Stercorariidae, Chilean Skua Stercorarius chilensis Bonaparte, 1857: First documented record for the state of Espírito Santo, southeastern Brazil. Check List, 8:560-562. doi.org
- Harrison, A.-L. et al. (2022). Sympatrically breeding congeneric seabirds (Stercorarius spp.) from Arctic Canada migrate to four oceans. Ecology and Evolution. doi.org
- Gilg, O. et al. (2013). Trans-Equatorial Migration Routes, Staging Sites and Wintering Areas of a High-Arctic Avian Predator: The Long-tailed Skua (Stercorarius longicaudus). PLoS ONE, 8(5):e64614. doi.org
- Spear, L.B. & Ainley, D.G. (2008). The Seabird Community of the Peru Current, 1980-1995, with Comparisons to Other Eastern Boundary Currents. Marine Ornithology 36, 125-144. doi.org
- van Bemmelen, R.S.A. et al. (2019). A Migratory Divide Among Red-Necked Phalaropes in the Western Palearctic Reveals Contrasting Migration and Wintering Movement Strategies. Frontiers in Ecology and Evolution, 86. doi.org
- Carlos, C.J. & Voisin, J.-F. (2013). The type locality of the South American Tern, Sterna hirundinacea (Aves: Charadriiformes: Sternidae), with designation of a lectotype. Zoologia (Curitiba), 356-358. doi.org
- Amorós, S. & Saravia, P. (2012). Aportes a la conservación de Sternula lorata, «gaviotín peruano», en la reserva nacional de paracas (rnp), ica – perú. Ecología Aplicada, 47-57. doi.org
- Velarde, E. & Rojo, P. (2012). Presumed Hybrid Elegant X Cabot's Terns Thalasseus Elegans X T Acuflavida in Isla Rasa, Gulf of California, Mexico. Marine Ornithology, 25-29. doi.org
- Pacheco, C.J. & Castilla, J.C. (2000). Ecología trófica de los ostreros Haematopus palliatus pitanay (Murphy 1925) y Haematopus ater (Vieillot et Oudart 1825) en mantos del tunicado Pyura praeputialis (Heller 1878) en la Bahía de Antofagasta, Chile. Revista Chilena de Historia Natural, 533-541. doi.org
- Cruz, S.M. et al. (2013). At–Sea Behavior Varies with Lunar Phase in a Nocturnal Pelagic Seabird, the Swallow-Tailed Gull. PLoS ONE 8(2), e56889. doi.org
- Blizard, M. & Pruett-Jones, S. (2017). Plumage pattern dimorphism in a shorebird exhibiting sex-role reversal (Actitis macularius). The Auk, 363-376. doi.org
- BirdLife International (2018). Larosterna inca: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22694834A132576903. doi.org
- BirdLife International (2024). Calidris minutilla: BirdLife International. The IUCN Red List of Threatened Species 2024: e.T22693396A255801668. doi.org
- BirdLife International (2024). Calidris pusilla: BirdLife International. The IUCN Red List of Threatened Species 2024: e.T22693373A255806237. doi.org
- BirdLife International (2024). Charadrius vociferus: BirdLife International. The IUCN Red List of Threatened Species 2024: e.T22693777A256247816. doi.org
- BirdLife International (2020). Thalasseus elegans: BirdLife International. The IUCN Red List of Threatened Species 2020: e.T22694552A178970750. doi.org
- Ministerio de Agricultura y Riego (2014). Decreto Supremo N.° 004-2014-MINAGRI: actualización de la lista de clasificación y categorización de las especies amenazadas de fauna silvestre legalmente protegidas. El Peruano (08-04-2014); ficha en SINIA, Ministerio del Ambiente. sinia.minam.gob.pe
- BirdLife International (2018). Sterna hirundinacea: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22694618A132562410. doi.org
- Palomino-Kobayashi, L.A., Zavalaga, C. & Pons, M.J. (2026). Molecular detection of Highly Pathogenic H5N1 Avian Influenza in seabirds from Lima, Peru in 2022. South Health, e003. doi.org
- Hernández-Ortiz, B.A. et al. (2026). Spatial association of seabirds and aquatic birds with highly pathogenic avian influenza (H5N1) outbreaks in Brazil: A nationwide ecological and statistical modelling approach. PLOS One, e0350505. doi.org
- Ydenberg, R.C. & Hemerik, L. (2024). Over-summering as a risk effect reducing population growth in a long-distance migrant shorebird. Avian Conservation and Ecology, 19. doi.org
- Perkins, A. et al. (2018). Combined bottom‐up and top‐down pressures drive catastrophic population declines of Arctic skuas in Scotland. Journal of Animal Ecology, 87: 1573-1586. doi.org
- Steen, V., Skagen, S.K. & Noon, B.R. (2014). Vulnerability of Breeding Waterbirds to Climate Change in the Prairie Pothole Region, U.S.A. PLoS ONE. doi.org
- Reese, G.C. & Skagen, S.K. (2017). Modeling nonbreeding distributions of shorebirds and waterfowl in response to climate change. Ecology and Evolution, 1497-1513. doi.org
- Jara, C., Pereda-Sánchez, A. & Calvo-Mac, C. (2019). Primer reporte del acantocéfalo Profilicollis altmani en una cigüeñuela de cuello negro Himantopus mexicanus. Revista Peruana de Biología, 157-160. doi.org