Blog · fauna del Perú · subgrupo
Petreles, pardelas y albatros del Perú: las aves que viven en el viento de la corriente de Humboldt
Son aves que pasan la mayor parte de la vida en el mar abierto y, en su mayoría, crían lejos del Perú. La corriente de Humboldt, fría y rica en alimento, las atrae desde las islas de Nueva Zelanda, el Atlántico sur y Galápagos. La guía incluye 31 especies del orden Procellariiformes.
Publicado el

Un grupo hecho para el mar abierto
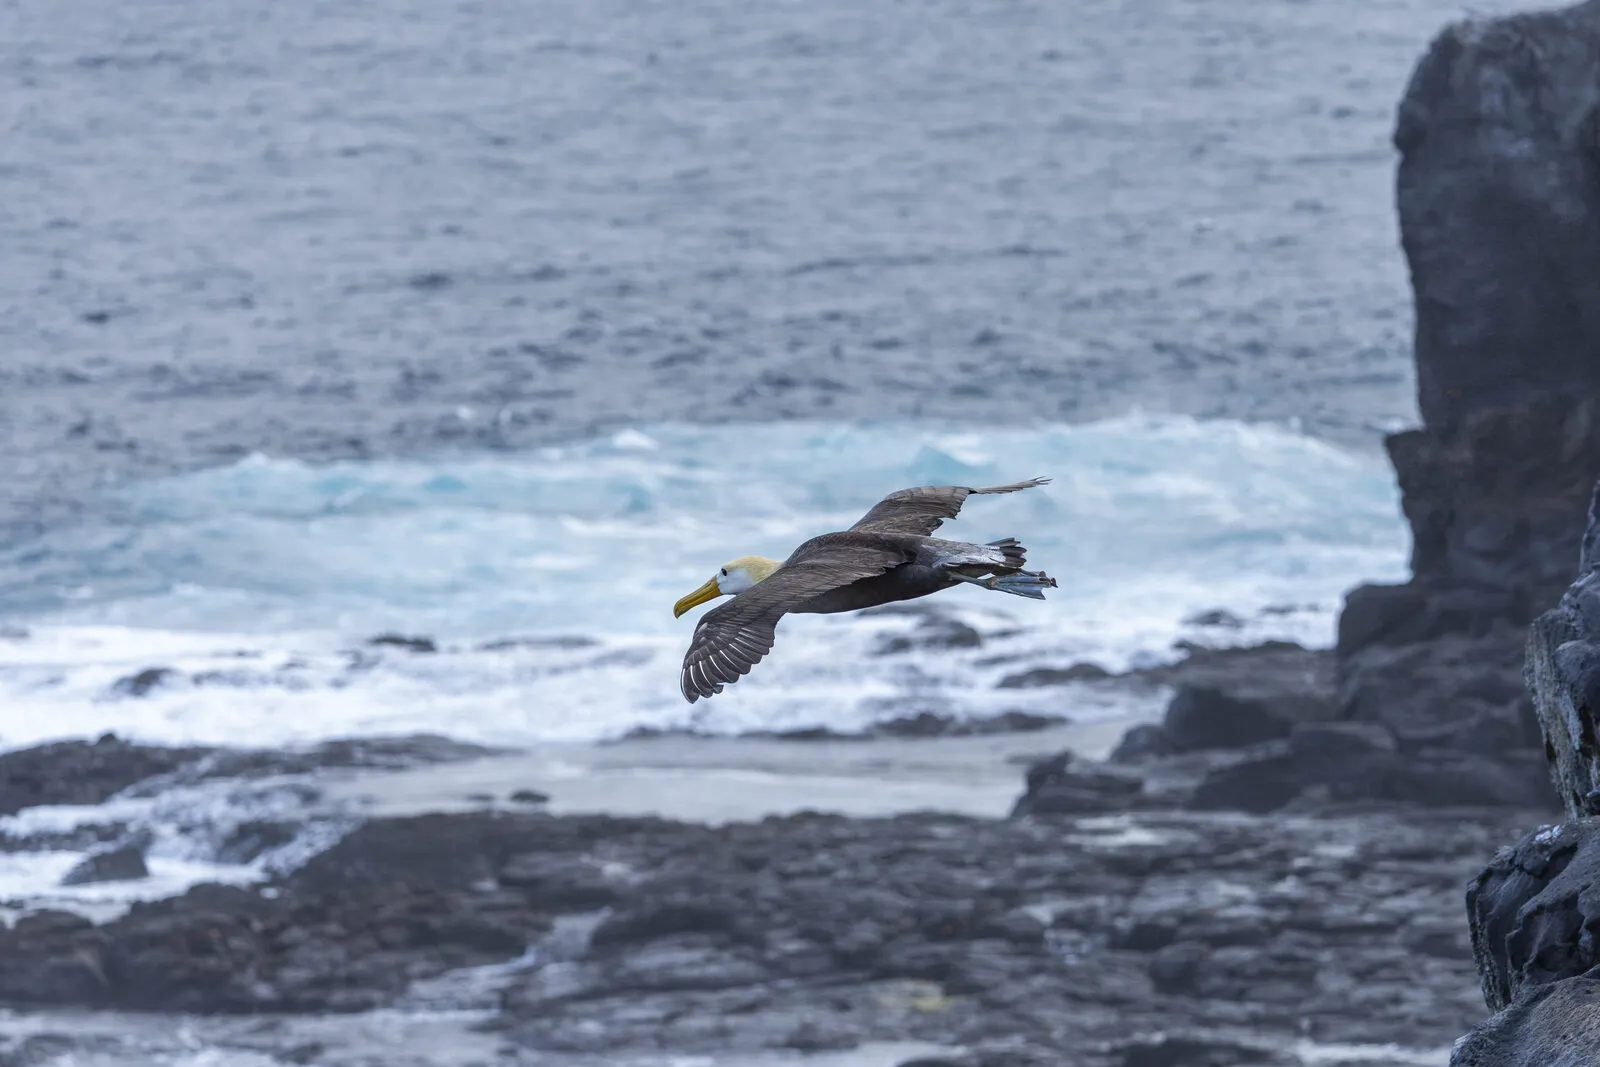
Phoebastria irrorata es un albatros de la familia Diomedeidae, descrito por Salvin en 1883.1 Pterodroma phaeopygia es un petrel de la familia Procellariidae, descrito por Salvin en 1876.2 En el otro extremo del tamaño, siete adultos de Oceanodroma tethys medidos en las islas Chao y Corcovado pesaron en promedio 23 g.3 Entre los petreles gigantes, los machos pesan alrededor de un 20 % más que las hembras, la mayor diferencia de tamaño entre sexos de todas las aves marinas.4
En la corriente del Perú, en una franja de hasta 370 km de la costa entre los 3° S y los 50° S, se contaron 2299 ejemplares de Procellaria aequinoctialis en 14 cruceros realizados de 1980 a 1995.5 Esa especie pertenece al conjunto de aves antárticas y subantárticas que se desplazan al norte fuera de su época de cría y se mantienen en las aguas más frías.5 En invierno llegan con ella Thalassarche melanophris, Thalassarche salvini, Fulmarus glacialoides y Daption capense, que comen sobre todo carroña o presas capturadas en la superficie.5 Otras no se van nunca de la corriente: Oceanodroma hornbyi está restringida a sus aguas frías, desde el norte de Ecuador hasta el centro de Chile.6
Albatros: los que cruzan el Pacífico
Casi toda la población de Phoebastria irrorata anida en la isla Española, en Galápagos, y unas pocas parejas crían en la isla de la Plata, cerca del continente; mientras incuban y crían pollos ya grandes, los adultos van a alimentarse al afloramiento costero frente al Perú.7 En 2008, todos los viajes largos de las aves seguidas desde Española y la Plata terminaron en la costa peruana, y la latitud más austral alcanzada tuvo una mediana de 7,18° S en las aves de Punta Cevallos.7 La colonia de la Plata, de 10 a 20 parejas, queda a unos 850 km del afloramiento peruano.7
Thalassarche salvini cría casi exclusivamente en Nueva Zelanda: para 2013 se calculaban 39995 parejas, el 99 % de ellas en las islas Bounty.8 Fuera de la época de cría muchos individuos cruzan el Pacífico: en 15 cruceros realizados frente a Chile y Perú entre 1980 y 1995 se anotaron 475, repartidos a lo largo del sistema de corrientes y con preferencia por las aguas sobre el talud continental.9
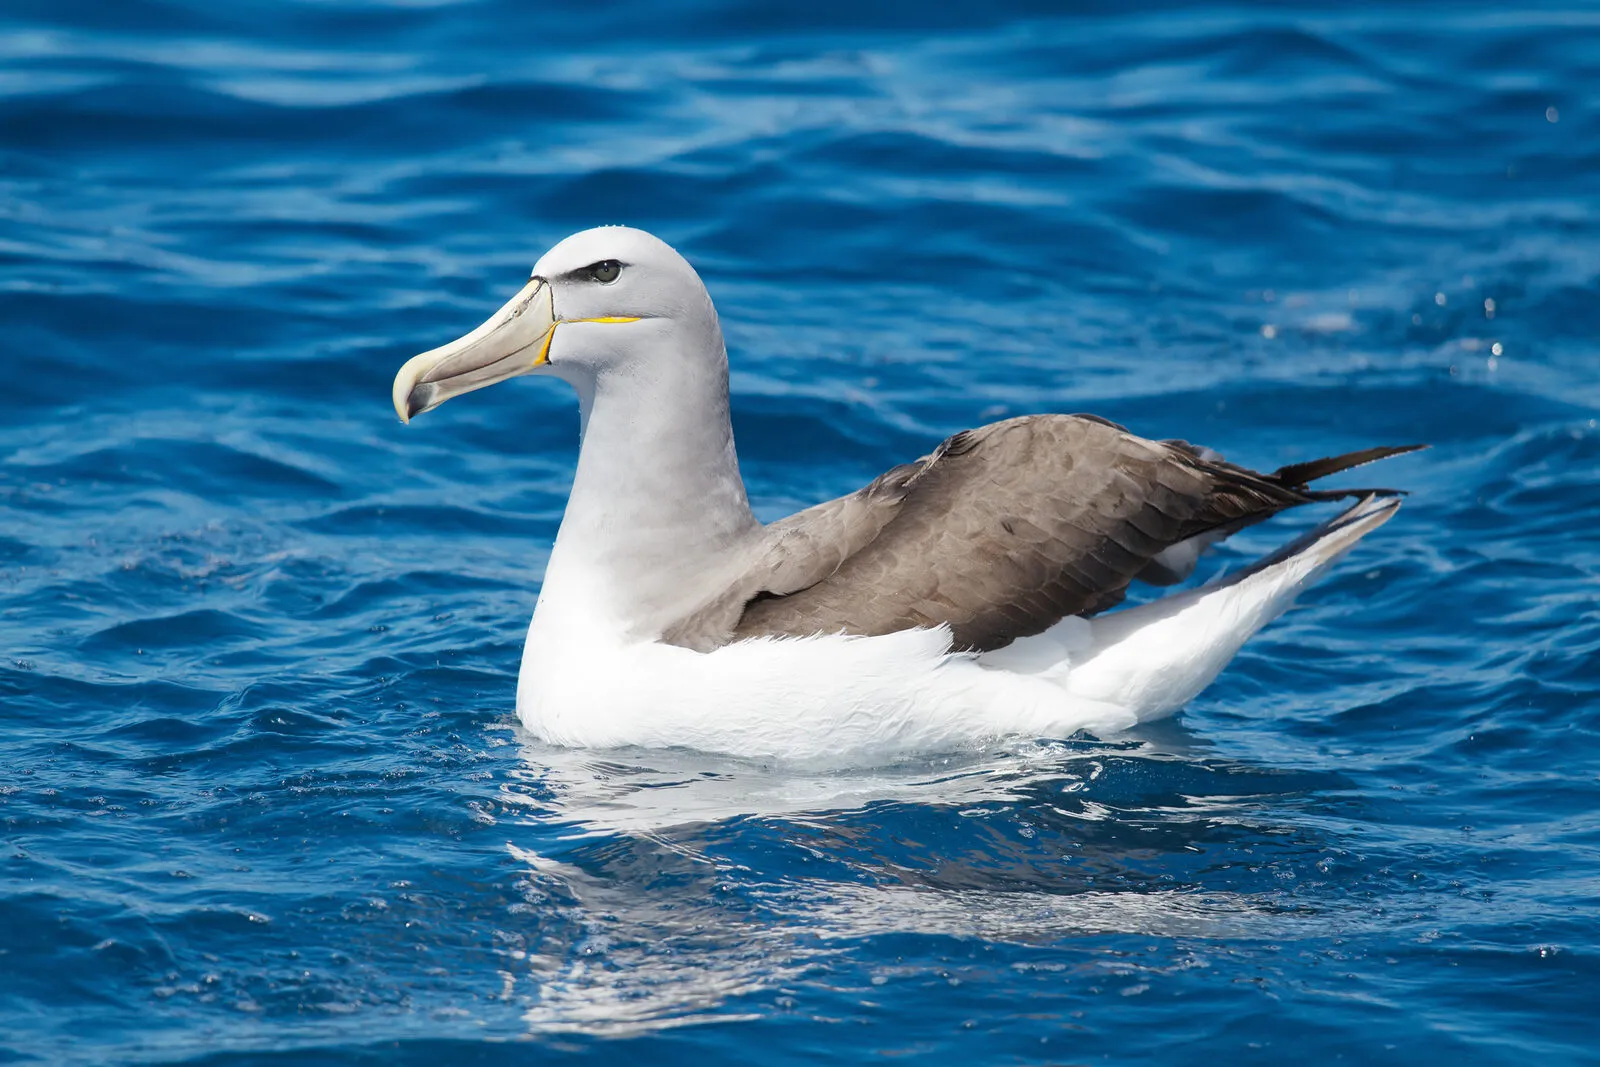

Como reproductor, Thalassarche bulleri está confinado a la región de Nueva Zelanda.10 La forma del norte anida en las Chatham, donde se estimaron 19400 parejas en 2016.11 Con geolocalizadores, esas aves llegaron a aguas de Chile y Perú entre marzo y julio y las dejaron entre agosto y octubre.12 Thalassarche eremita cría solo en The Pyramid, el islote más austral de las Chatham, con unas 4500 parejas cada año.13 Tres adultos seguidos por satélite en 1997 y 1998 se movieron entre los 26° S y los 6° S a lo largo de la costa sudamericana.14
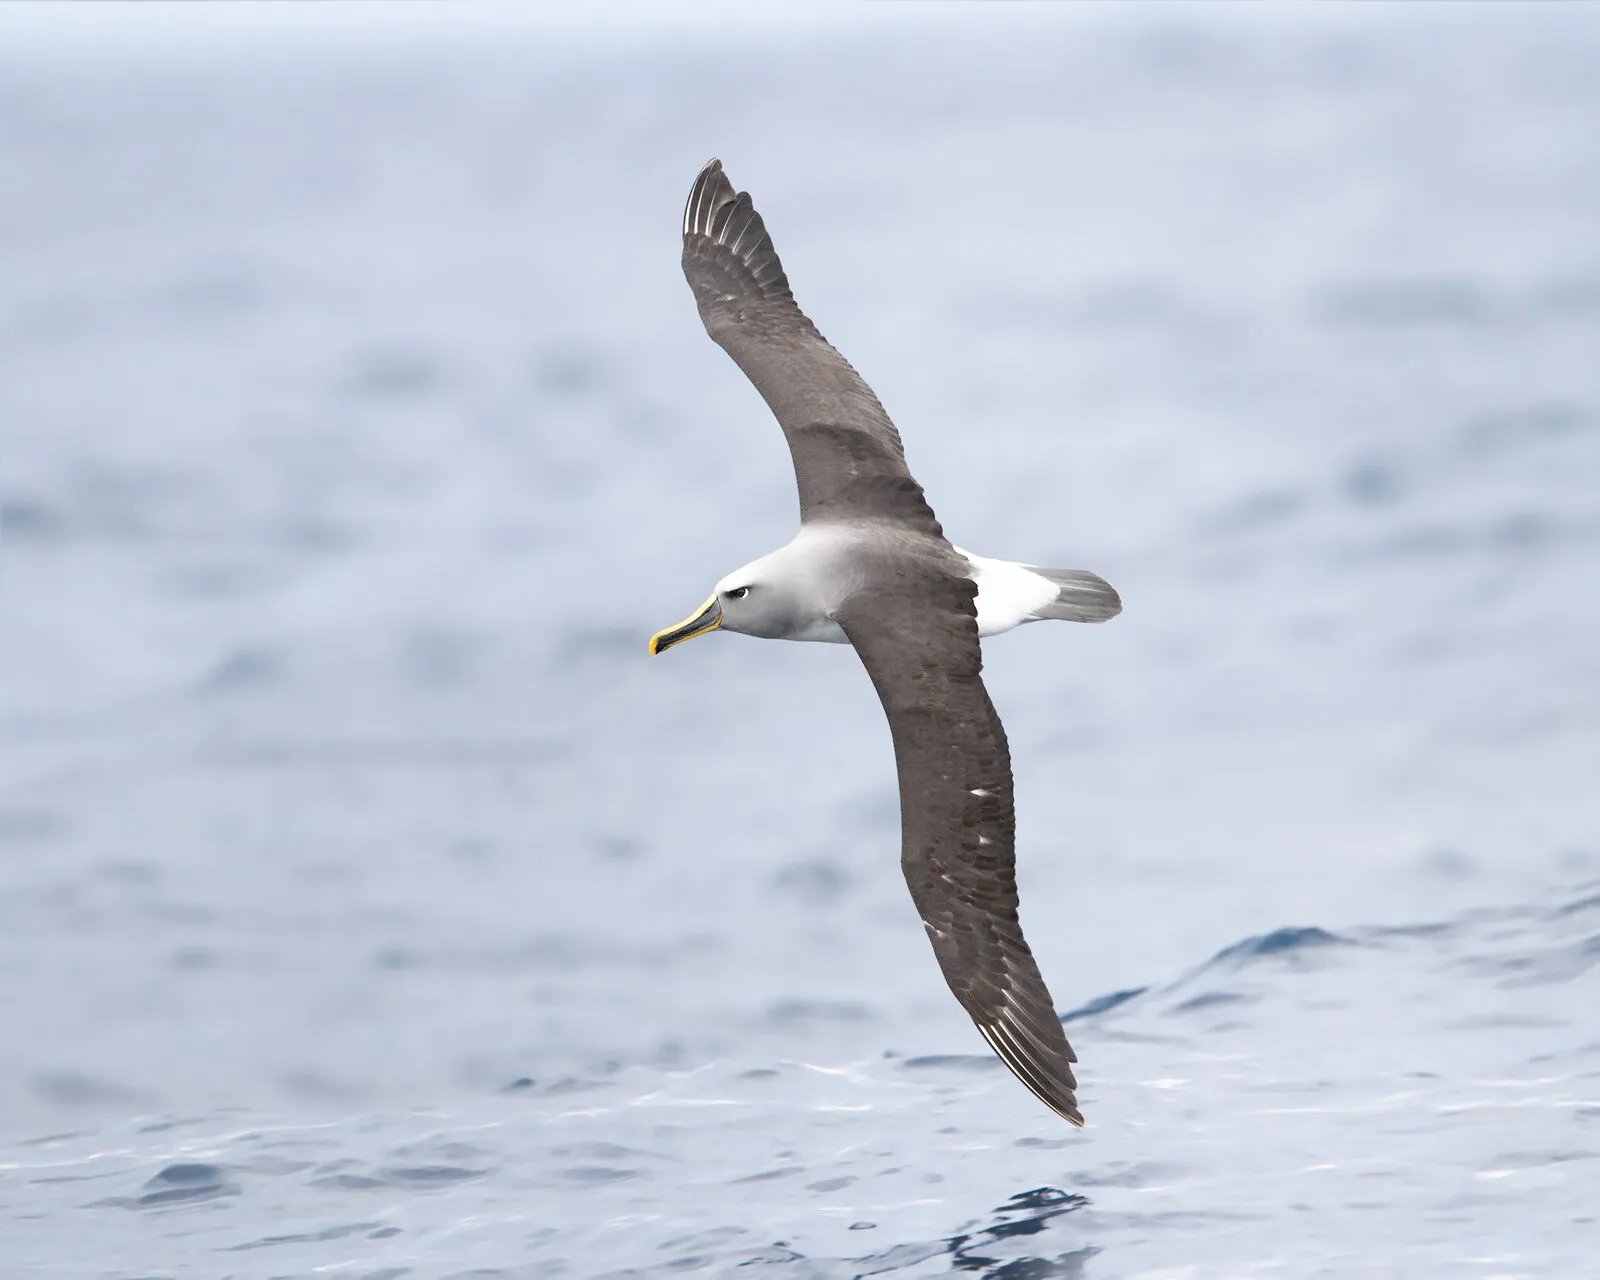

Thalassarche melanophris cría en varias islas del sur de Chile, en las Malvinas y en Georgia del Sur, entre otras.15 Los censos de 2001 a 2006 sumaron al menos 122920 parejas en 6 sitios de Chile, algo más del 20 % de la población mundial.16 En cambio, para el Perú Thalassarche chrysostoma es solo un visitante no reproductor con registros escasos, según el Libro Rojo de la fauna silvestre amenazada del país.17


Petreles, pardelas y fulmares
Procellaria aequinoctialis cría en islas subantárticas de Francia, Nueva Zelanda y Sudáfrica, además de Georgia del Sur y las Malvinas.18 Dos aves de Georgia del Sur, seguidas con geolocalizadores, pasaron el pleno invierno en la corriente de Humboldt frente a Chile y de allí volvieron directo a la colonia.19 Procellaria parkinsoni es la más pequeña de su género y la que cría más al norte.20 En 28 cruceros del Pacífico tropical oriental, entre 1976 y 1990, se registraron 618 aves cerca de la costa desde el sur de México hasta el norte del Perú, y su límite sur en la costa continental estuvo cerca de los 5° S.21

Pterodroma phaeopygia es endémico del archipiélago de Galápagos y cría solo en las tierras altas de 5 islas.22 Uno de los adultos seguidos por satélite durante la cría entró en el extremo norte de la zona económica exclusiva del Perú.22 En Pterodroma cookii, las aves de Little Barrier migran al Pacífico norte, mientras que las de Codfish siguen la corriente de Humboldt hasta su principal área no reproductiva frente al Perú, hacia los 15° S, adonde llegaron tras unos 19 días de viaje.23 Esa población de Codfish es la menor: unas 6000 parejas, frente a unas 286.000 en Little Barrier.24
Pterodroma externa cría solo en la isla Alejandro Selkirk, del archipiélago de Juan Fernández.25 Siete aves con geolocalizadores, seguidas de 2020 a 2022, llegaron a 5781 km de la colonia antes de la puesta, en aguas del Pacífico suroriental.26 Pterodroma defilippiana tiene colonias en San Félix y San Ambrosio, en las Desventuradas, y en Santa Clara y Robinson Crusoe, en Juan Fernández; en el mar se la encuentra frente al Perú y al norte y centro de Chile.15 De Pterodroma neglecta se distinguen dos subespecies: la forma nominal anida en el Pacífico suroccidental y Pterodroma neglecta juana en San Ambrosio, en el Pacífico oriental.27
Ardenna creatopus cría solo en 3 islas del centro de Chile: al menos el 70 % de la población anida en Mocha, hasta el 20 % en Robinson Crusoe y hasta el 10 % en Santa Clara, y la población mundial se estima en unas 60.000 aves.28 Los lugares de cría de Puffinus griseus son Nueva Zelanda, Australia y Chile.29 Según los autores, buena parte de la población migra al Pacífico norte tras criar en el verano austral, lo que explicaría sus conteos más altos en los censos peruanos de otoño e invierno.29 El único lugar de cría conocido de Puffinus bulleri son las islas Poor Knights, en Nueva Zelanda, y hacia 1981 la población mundial era de unos 2.500.000 aves.30
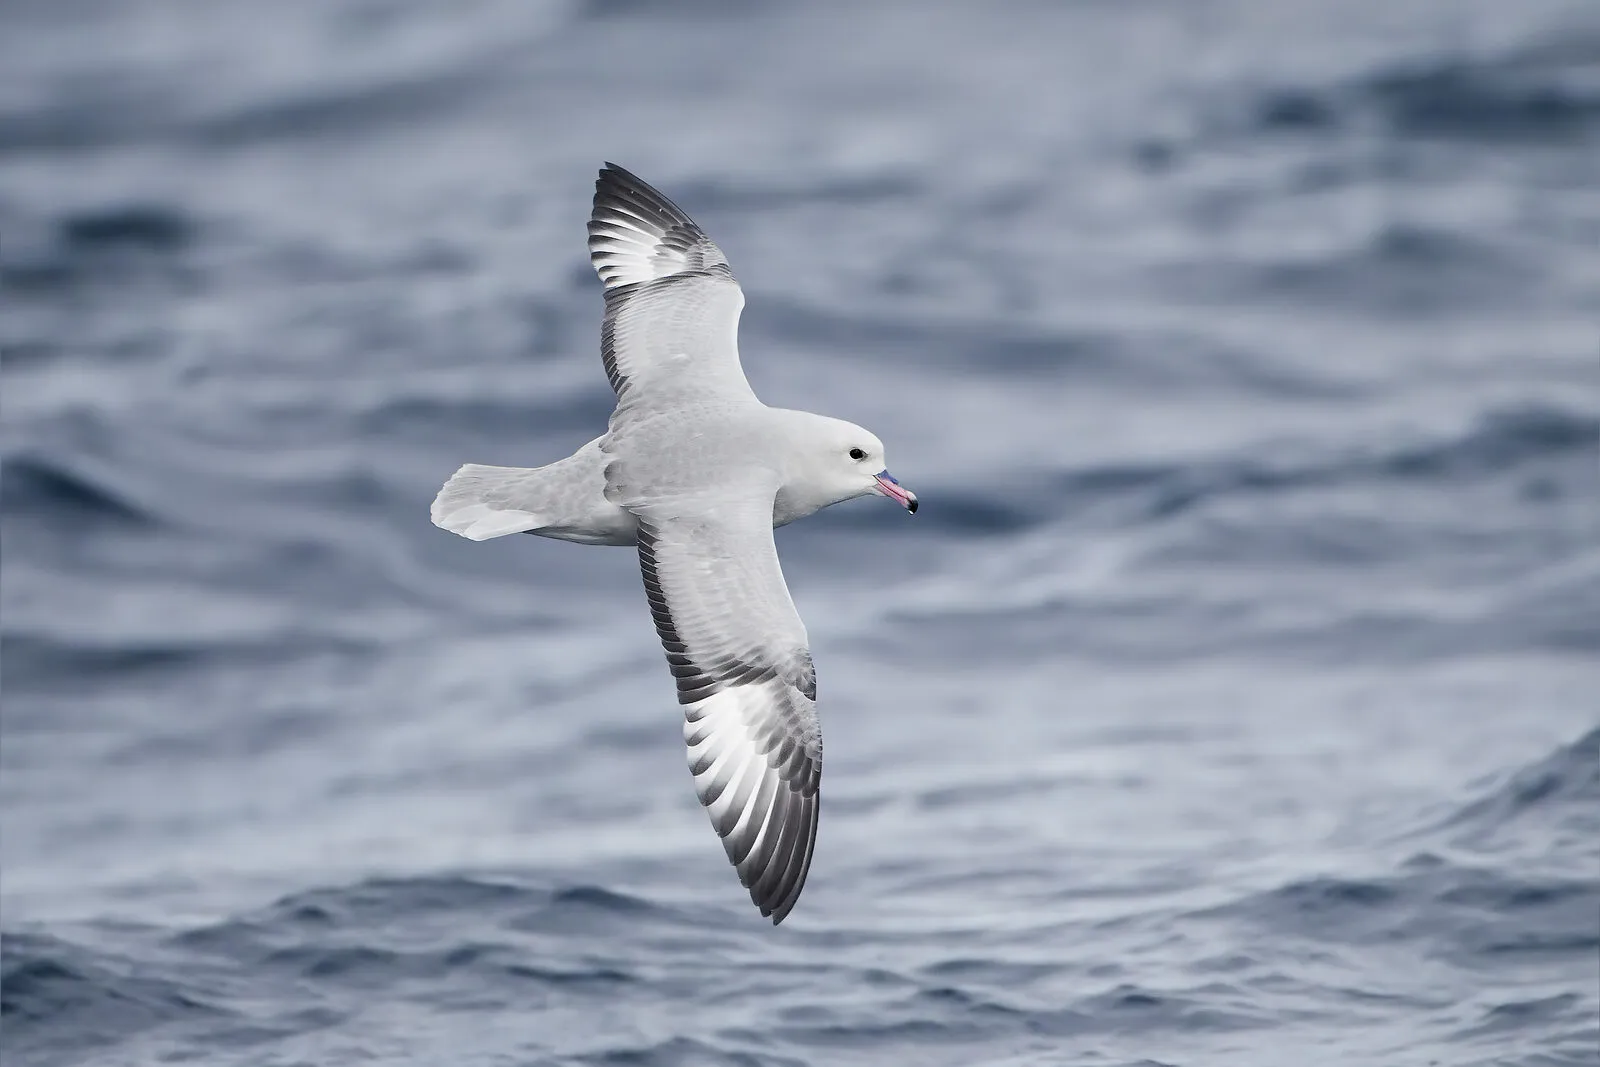
Macronectes giganteus cría alrededor de todo el Océano Austral; en Chile, la colonia mejor conocida es la isla Noir, con unas 1756 parejas contadas entre 2003 y 2013.31 Macronectes halli tiene su mayor colonia en Georgia del Sur, con 15398 parejas, más del 70 % del total mundial.32 El primer informe publicado de la especie en aguas peruanas describe 7 juveniles vistos en julio y agosto de 2004 cerca de Punta San Juan, el puerto de Ilo y la isla La Vieja.33 Daption capense tiene distribución circumpolar y cría en el continente antártico y en numerosas islas antárticas y subantárticas.34 Fulmarus glacialoides se ha estudiado en colonias antárticas; en la isla Pedro I se estimaron entre 3500 y 4500 parejas en enero de 2022.35 Pachyptila belcheri cría en las Malvinas y en Kerguelen, y desde 1984 se conoce también una colonia en la isla Noir, en el sur de Chile.3637


Golondrinas de mar y el potoyunco peruano
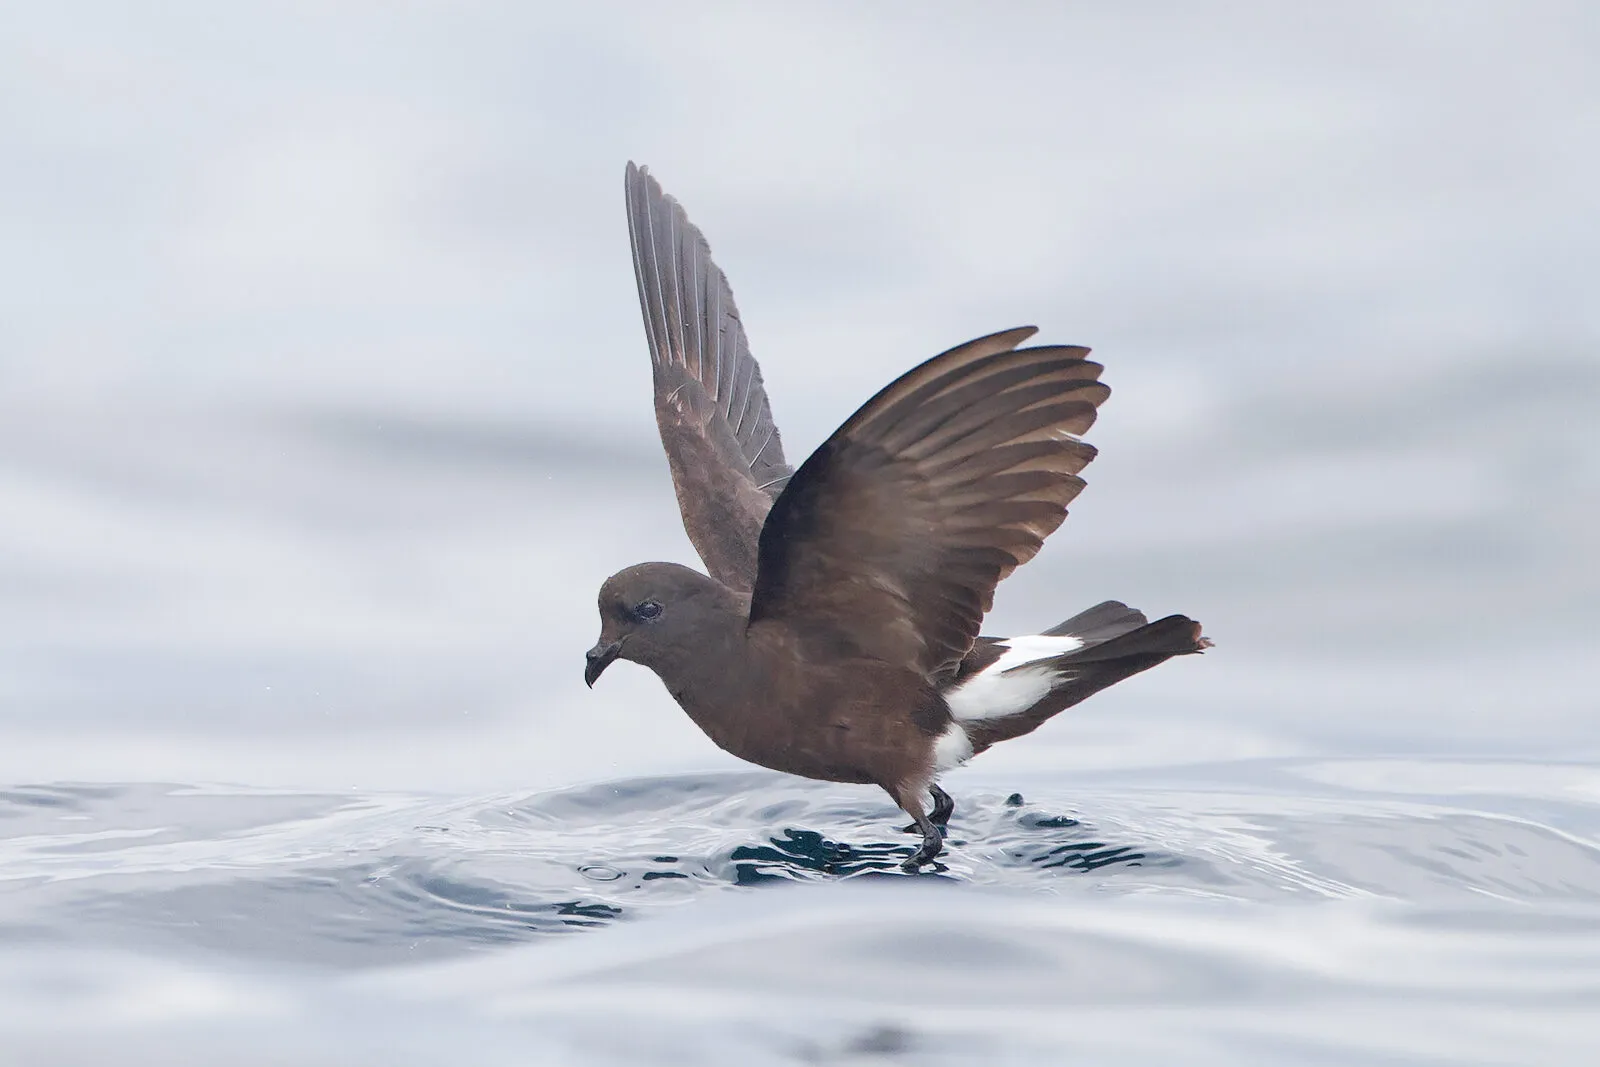
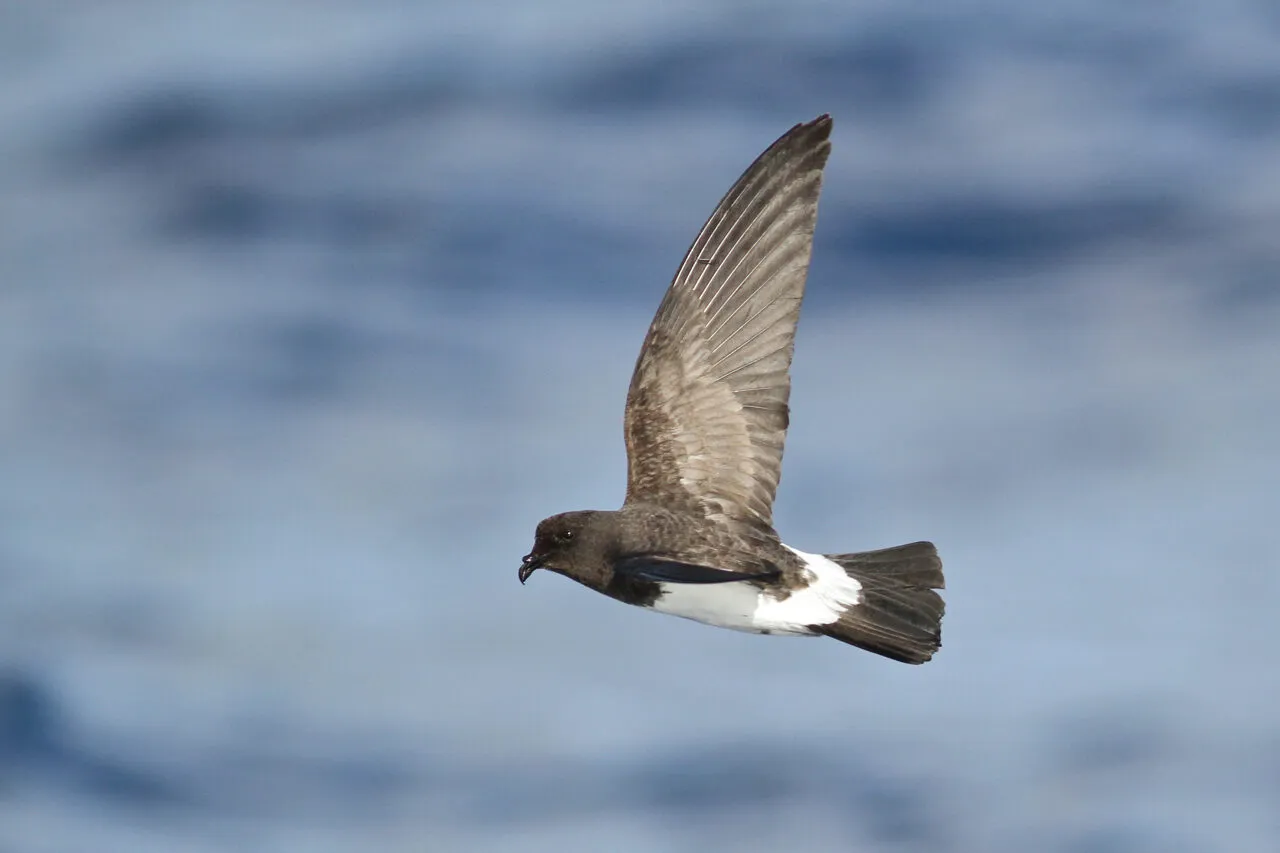
Oceanodroma tethys es una especie del Pacífico oriental tropical, registrada en el mar desde Baja California Sur hasta el norte de Chile.38 La subespecie nominal cría en Galápagos y se desplaza al norte sobre aguas oceánicas; kelsalli cría en el Perú y se mueve de México a Chile sobre la plataforma continental.38 En las islas Chao y Corcovado se describieron dos nuevas localidades de cría, donde no hay grandes colonias de aves guaneras ni se ha extraído guano en más de 20 años.3
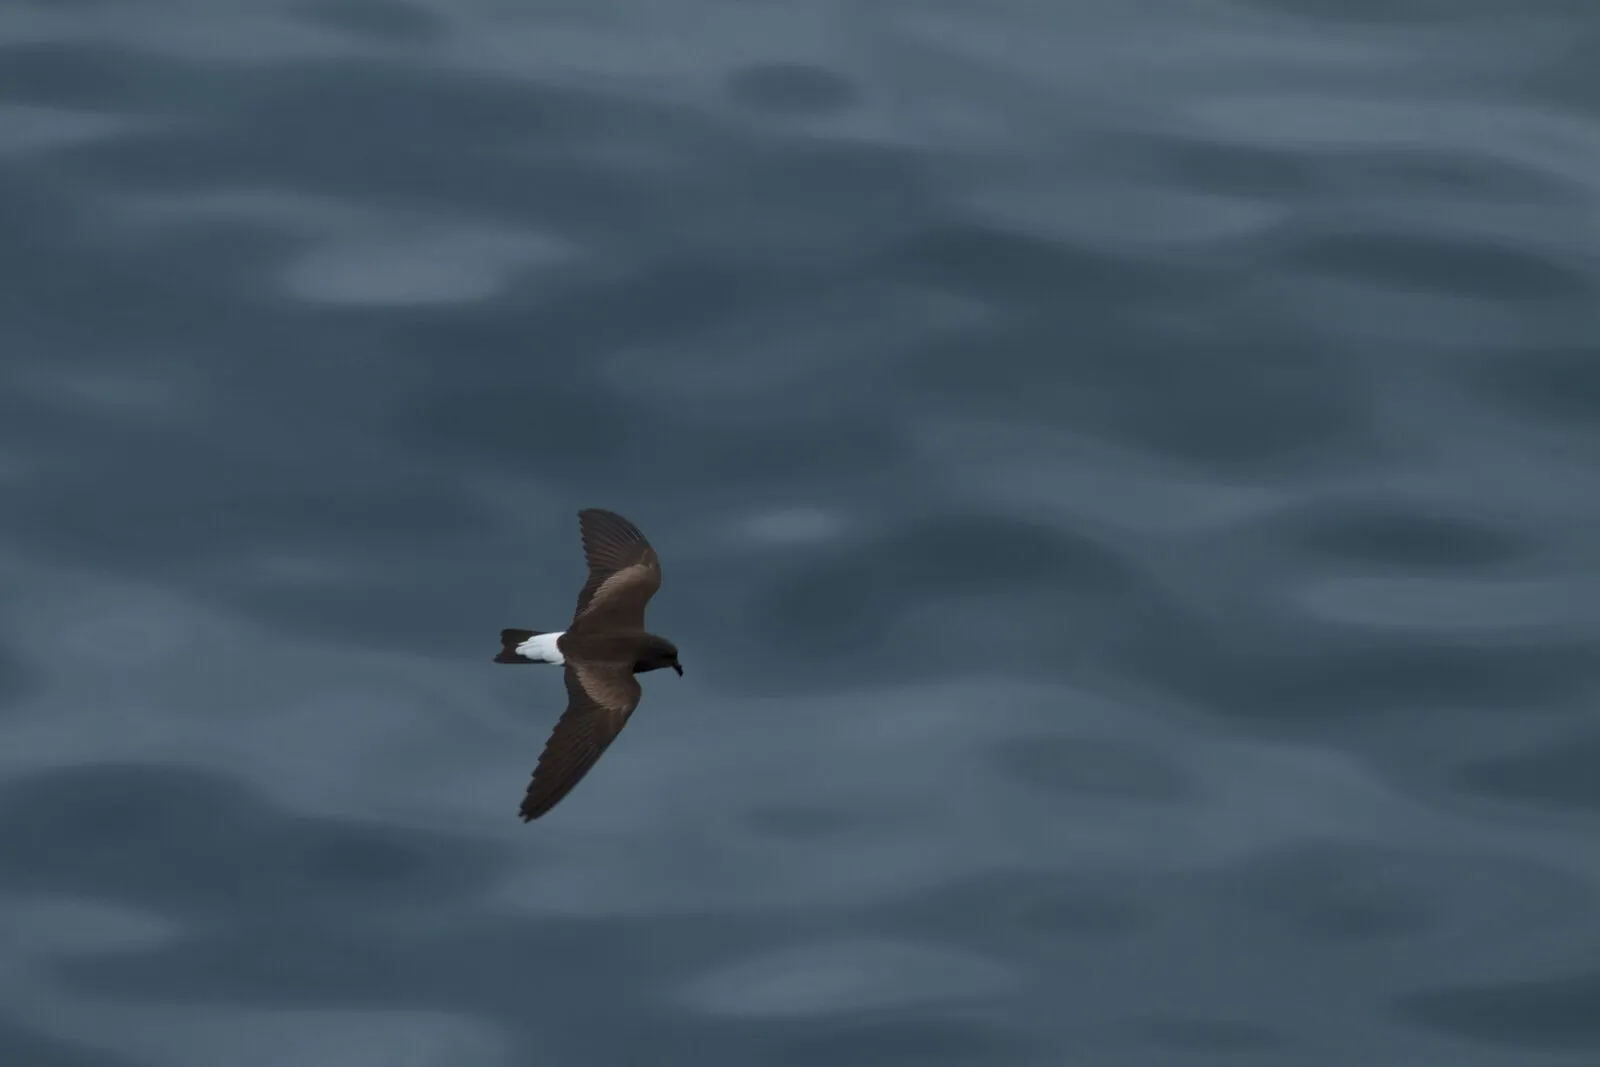

Oceanodroma markhami es una golondrina de 21 a 23 cm que vive sobre todo en aguas tropicales del Pacífico oriental, entre los 5° N y los 29,9° S.39 En octubre de 2022 se halló un sitio de cría en Pampa Pie de Candela, en Tacna, a 11,5 km de la costa y a unos 160 m de altitud, con 15 nidos y unas 30 parejas estimadas.40 Oceanodroma microsoma cría en México y en el Perú llega como migrante boreal no reproductora y se la considera poco común; sus registros peruanos son de noviembre a marzo.41 Oceanodroma melania, según un estudio del IMARPE, llega de Panamá hasta al menos los 8° S.42 Oceanites gracilis se conoce en la costa del Pacífico desde el sur de Colombia, por Ecuador y Perú, hasta el centro de Chile.43
Oceanites oceanicus es migratoria transecuatorial: la forma nominal pasa el invierno austral en el Atlántico y el Pacífico norte, mientras que en la corriente de Humboldt no hay registros confirmados de esa forma y todos los especímenes se atribuyen a la forma chilena.44 Pelagodroma marina habita aguas templadas y tropicales de los océanos Atlántico, Índico y Pacífico.45 Fregetta grallaria cría en el Pacífico y el Atlántico sur: la forma nominal en Lord Howe y las Kermadec, con unas 2000 parejas, y otra población, de unos pocos cientos de parejas contadas en nidos, en Juan Fernández y las Desventuradas.46


Pelecanoides garnotii es un ave pequeña y compacta: 46 ejemplares pesados en la isla Choros, en Chile, dieron una masa media de 220 g.47 Bajo el agua se propulsa con las alas, como los pingüinos, y no con los pies, como los cormoranes.48 A comienzos del siglo XX se la había documentado desde la isla Lobos de Tierra, a los 6° S en el Perú, hasta Chiloé, a los 42° S en Chile.49 Un estudio de 2019 contó solo 7 sitios de cría activos, y en el Perú las islas San Gallán y La Vieja reúnen entre 12.000 y 13.000 parejas.49
Cómo distinguirlas
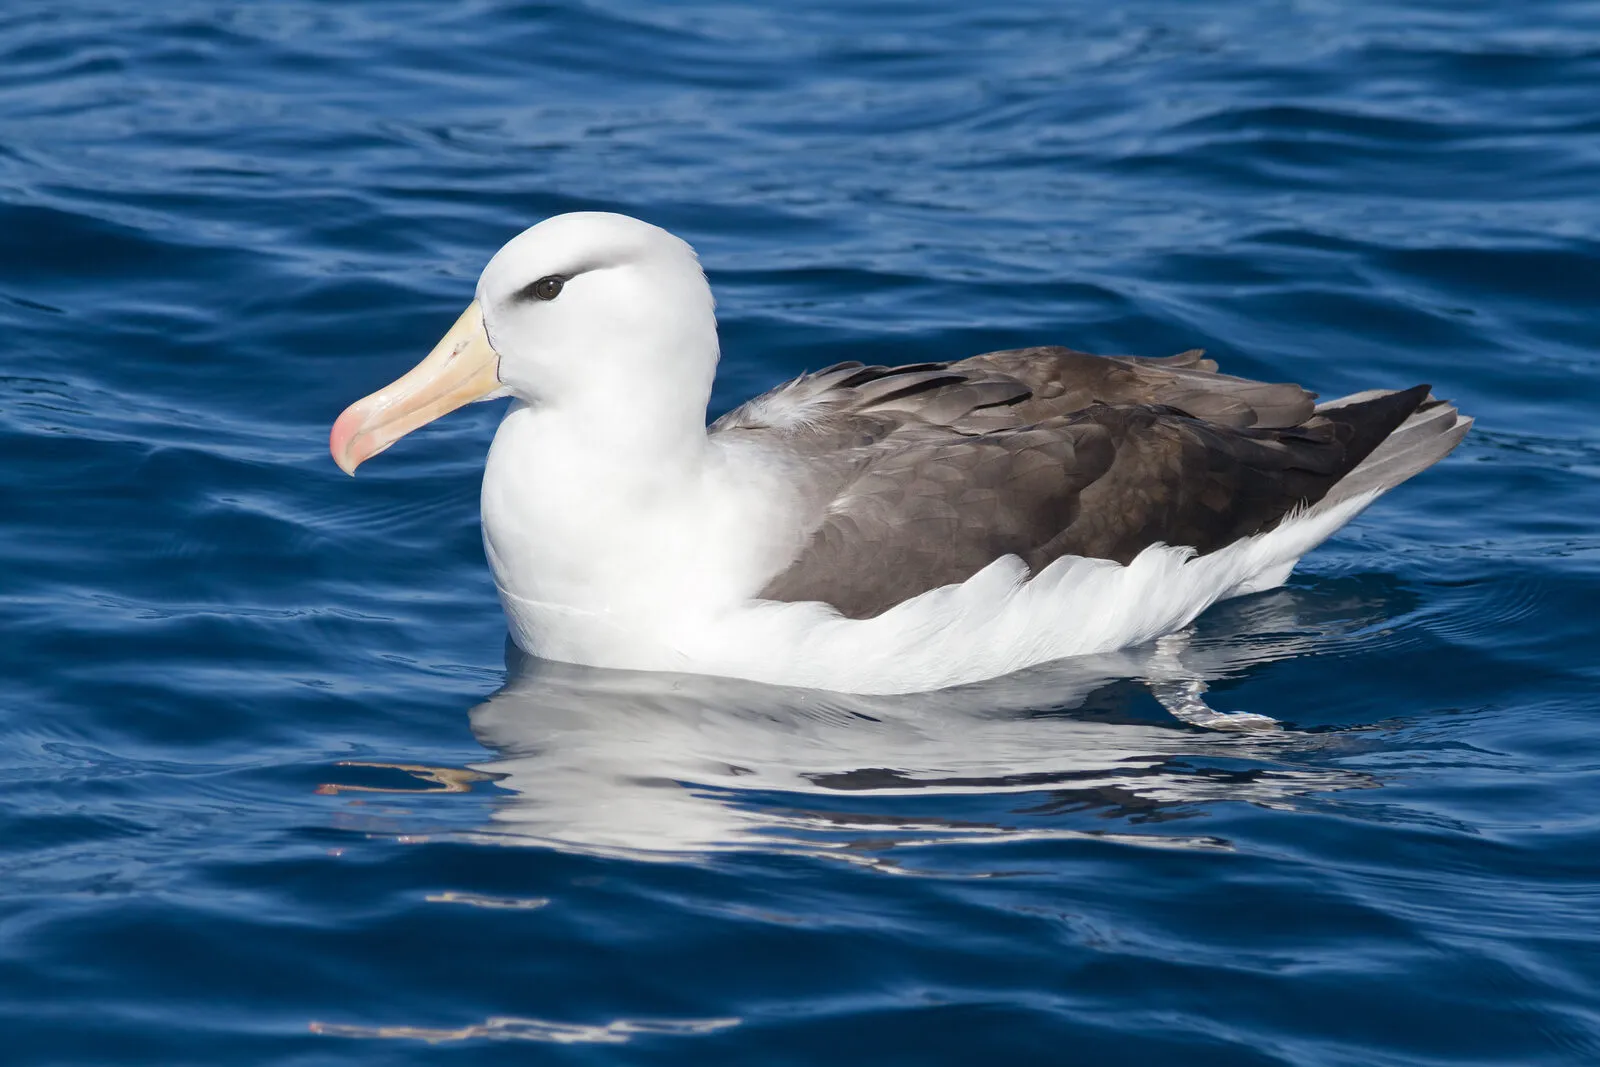
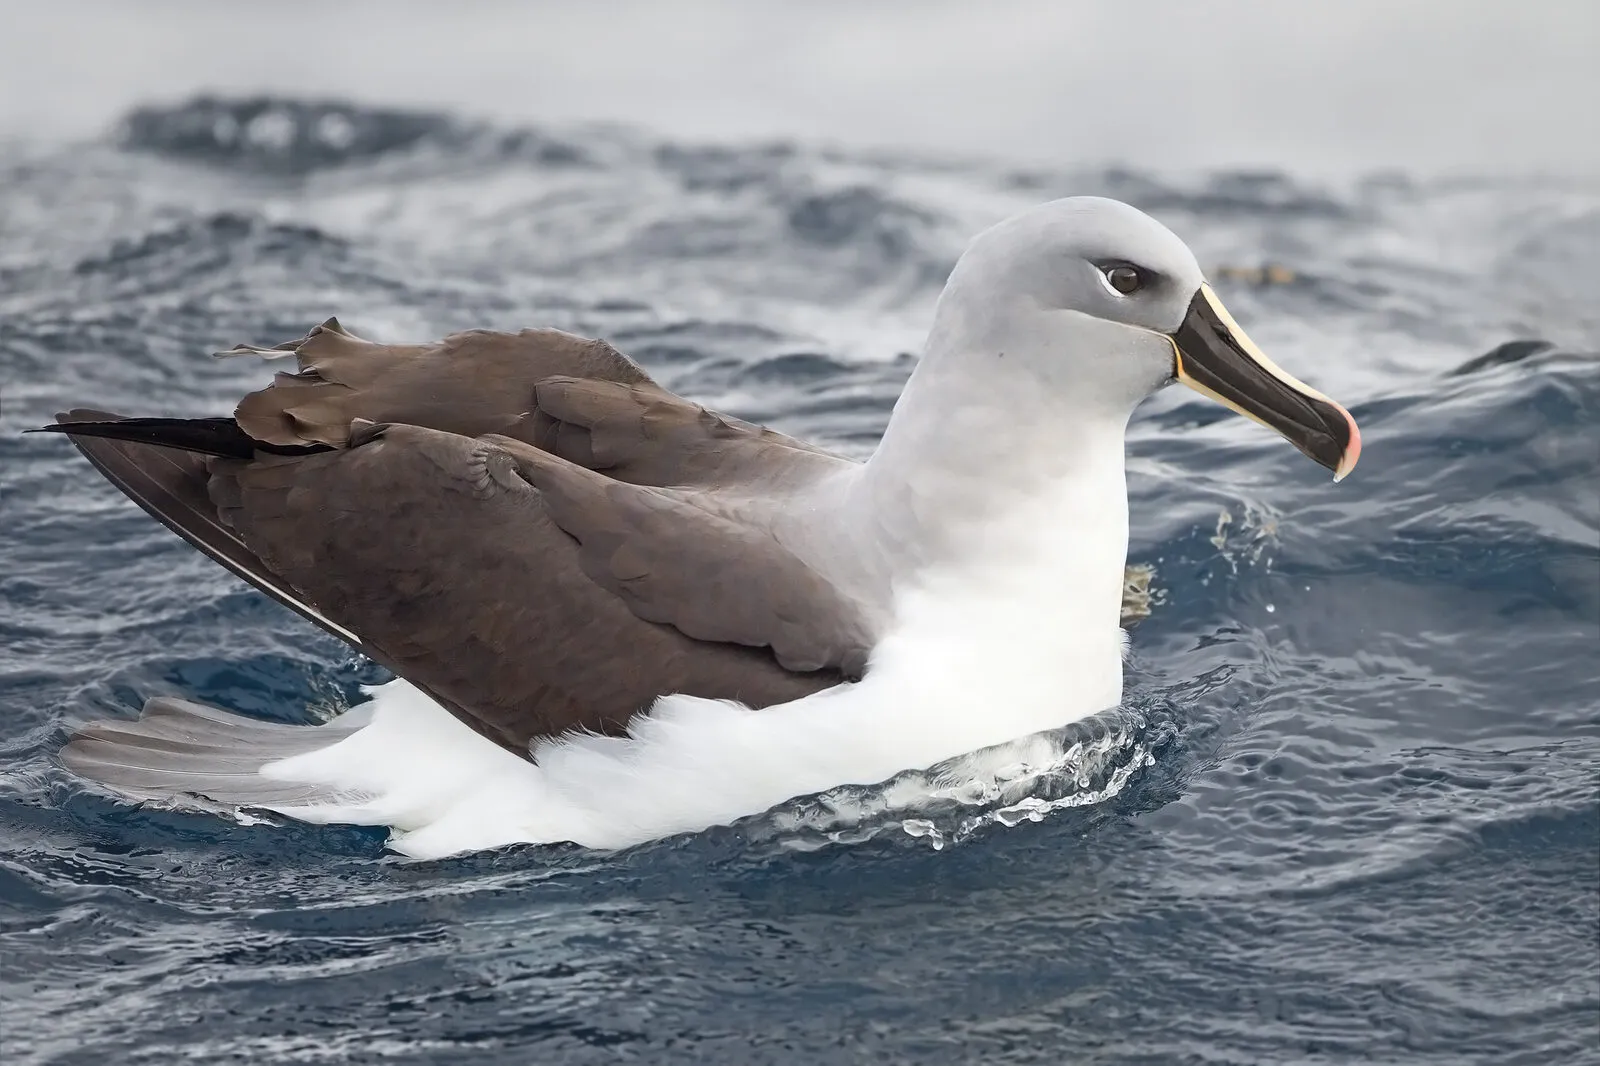
Entre los albatros, un adulto de Thalassarche salvini visto frente a la Patagonia argentina tenía la cabeza, el manto y el dorso grises, la coronilla y el mentón gris pálido, la rabadilla y la parte inferior blancas, las alas superiores negras y un pico gris pálido con arista amarilla y la punta del maxilar inferior negruzca.50 En Thalassarche bulleri, la cabeza de la forma del sur es gris parduzco pálido, como la de Thalassarche salvini, mientras que en la del norte el casquete plateado cubre solo el frente de la frente y la coronilla y detrás del ojo la cabeza es gris oscuro, cercana a la de Thalassarche eremita.12 Las dos formas se parecen tanto en medidas y plumaje que separarlas en el mar es difícil.12 Un ave vista en 1988 frente a Chiclayo tenía el pico color paja con la punta oscura en ambas mandíbulas, un rasgo que apartaba a Thalassarche eremita de los demás albatros del grupo de Thalassarche cauta.51
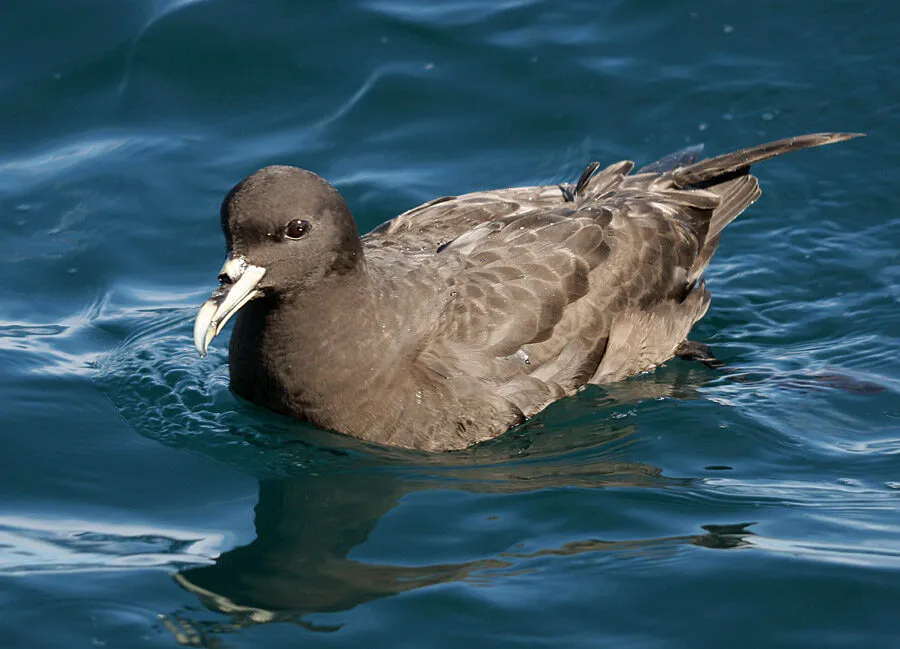
Procellaria aequinoctialis es el mayor de los petreles que anidan en madrigueras.52 Su mancha blanca en la barbilla es muy variable.53 Frente a ella, Procellaria parkinsoni muestra la cabeza más redonda y las alas sobresaliendo más allá de la cola cuando se posa en el agua.54 El plumaje de Procellaria parkinsoni es pardo negruzco en todo el cuerpo, y el pico tiene puntas negras bien definidas en ambas mandíbulas.55 Macronectes halli se separa de su especie hermana por la placa córnea de la punta del pico, que es rojiza a cualquier edad.56 Macronectes giganteus, en cambio, tiene dos fases de plumaje, una blanca, con apenas unas plumas negras sueltas, y otra oscura.57 Pterodroma externa mide unos 43 cm, tiene el casquete pardo grisáceo, el dorso gris plateado y una M oscura que cruza la espalda de punta a punta de ala.25
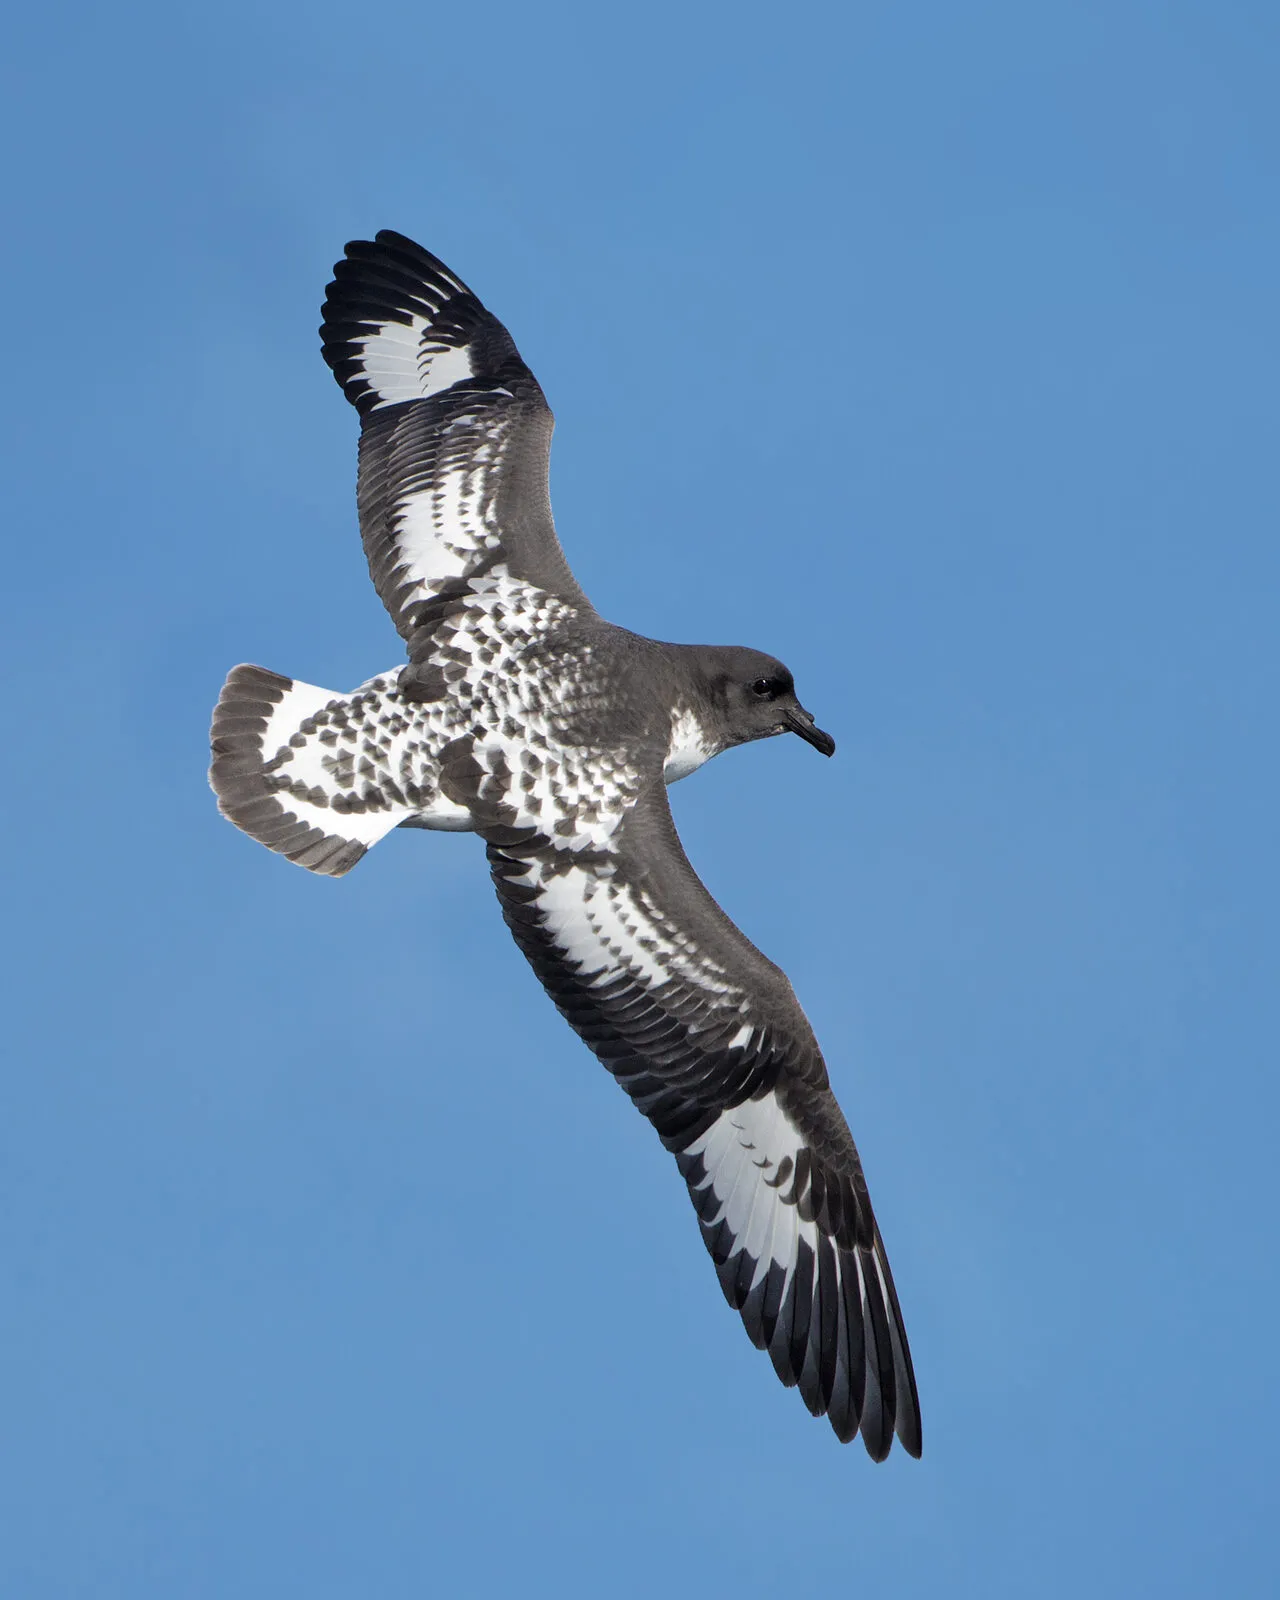
En Oceanodroma tethys el blanco cubre más de la mitad del largo de la cola, y la membrana entre los dedos es negra, no amarilla como en Oceanites oceanicus.38 Oceanodroma markhami es oscura casi por completo, con una banda diagonal bien visible en la parte superior de cada ala y la cola ahorquillada.58 En el potoyunco peruano, Pelecanoides garnotii, los huesos palatinos del cráneo casi se juntan por la línea media, mientras que en Pelecanoides urinatrix y Pelecanoides georgicus quedan separados.48
Dónde y cuándo se registran en el Perú
En la corriente del Perú, la densidad media de Procellaria aequinoctialis fue de 30,7 aves por 100 km² en verano y de 55,8 en invierno.5 Frente al sur del Perú fue el ave más numerosa junto a las embarcaciones artesanales que pescan pota o calamar gigante (Dosidicus gigas), con 181 de las 300 aves registradas, el 60,3 %.59 En dos censos de 2019 frente al Perú, la presencia de Thalassarche salvini coincidió en el espacio con la de los cefalópodos y se asoció a aguas más cálidas y saladas, de menor latitud y menor profundidad.60 En otoño de 2019, un ejemplar joven de Thalassarche eremita fue fotografiado a 98 km de Punta Caballas.61
En tres cruceros de evaluación de recursos del IMARPE, en 2019, Oceanodroma markhami se vio frente a toda la costa peruana, casi siempre más allá de la plataforma continental.42 En verano se concentró entre Chimbote y Pisco, y en otoño entre Atico y la frontera con Chile.42 Los registros de Pelecanoides garnotii en el mar frente al Perú fueron 57 entre 2005 y 2010, desde Sechura hasta Cañete, en grupos de 1 a 10 aves a entre 6,1 y 51 km de la costa.62 Para Oceanodroma microsoma, los registros peruanos conocidos proceden solo del extremo norte, entre Tumbes y Lambayeque.41
Comer en el mar: descartes, delfines y anchovetas
Alrededor de las embarcaciones artesanales del calamar gigante en el sur del Perú, cerca del 17 % de todas las aves observadas comía los descartes de la pesca.59 Thalassarche salvini lo hizo en el 27 % de los casos.59 En barcos del calamar gigante y de la pesca de tiburón con palangre, Thalassarche eremita comió vísceras descartadas en el 37 % de los casos, sobre todo el hígado.61 Junto a una palangrera artesanal de tiburón, la forma del norte de Thalassarche bulleri llegaba a las vísceras después de Procellaria aequinoctialis y de Thalassarche melanophris, y tenía que pelear con este último por la comida.15
Procellaria parkinsoni sigue a los delfines: 469 de las 618 aves registradas en el Pacífico tropical oriental, el 76 %, iban con manadas de 10 especies de delfines.21 Se mantuvo alejada de las grandes bandadas que se alimentan junto con atunes y con Stenella attenuata y Stenella longirostris.21 Los autores concluyeron que se zambulle para recuperar restos de presas grandes que esos delfines despedazan bajo la superficie.21
Pelecanoides garnotii es una buceadora notable: en 22 adultos la profundidad máxima media fue de 31,6 m y la inmersión más profunda llegó a 83,1 m.63 En 118 estómagos de la isla La Vieja, las presas principales por masa fueron la anchoveta Engraulis ringens (33,9 %), el krill Euphausia mucronata (26,8 %) y la munida Pleuroncodes monodon (24,3 %).64 Las anchovetas que comió medían en promedio 45,9 mm, muy por debajo de la talla mínima comercial de 120 mm.64
Criar en otra parte
En la isla Española, estudiada en 1970 y 1971, la incubación del albatros de las Galápagos duró en promedio 60 días y la crianza del pollo hasta su primer vuelo, 167 días.65 La especie no defiende un lugar de nido estable: los adultos trasladan el huevo largos trechos, lo que causa muchas pérdidas.65
Las islas Bounty, donde anida Thalassarche salvini, están a 760 km al este de Nueva Zelanda y son 22 afloramientos de granito desnudo que suman 135 ha.66 The Pyramid, de Thalassarche eremita, es un islote de 1,7 ha que se eleva 174 m.13 Está a 870 km al este de la Nueva Zelanda continental y es casi inaccesible.14 En las Kermadec, Pterodroma neglecta tiene nidos confirmados en cuatro islas del sur, con probablemente menos de 50 parejas en total.67
Los varamientos masivos de prions en la costa del Pacífico de Sudamérica parecen ser un evento invernal anual: el 7 de julio de 1968 se estimaron más de 50.000 prions en 4 horas de observación en Rinconada, Antofagasta.37 Las 8 aves muertas examinadas no tenían grasa y tenían los estómagos vacíos o casi vacíos.37
Estado de conservación y amenazas
La Lista Roja de la UICN clasifica como En Peligro Crítico a Phoebastria irrorata y a Pterodroma phaeopygia.6869 La lista peruana aprobada en 2014 también las pone en esa categoría y prohíbe cazarlas, capturarlas, poseerlas, comerciarlas, transportarlas y exportarlas con fines comerciales.70 Las dos listas no siempre coinciden en las demás especies: Thalassarche eremita es Vulnerable para la UICN y En Peligro Crítico en el Perú.7170 Thalassarche melanophris es de Preocupación Menor para la UICN y está En Peligro en el Perú.7270 Pelecanoides garnotii es Casi Amenazada para la UICN y Vulnerable en el Perú, y desde 2002 figura en el Apéndice I de la Convención sobre Especies Migratorias.7374
Los dos petreles gigantes figuran como Preocupación Menor en la UICN y como Casi Amenazados en la lista peruana.757670 Procellaria aequinoctialis y Thalassarche salvini son Vulnerables tanto para la UICN como en la lista peruana.777870
Procellaria aequinoctialis es el ave marina que muere en mayor número en palangres en el Océano Austral.79 De las 78 aves de Procellaria parkinsoni capturadas en aguas de Nueva Zelanda entre 2002 y 2013, el 96,2 % cayó en palangres.80 En Georgia del Sur, el número de parejas reproductoras de Thalassarche melanophris en las colonias de estudio de la isla Bird bajó de 607 en 1990 a 202 en 2012, y el esfuerzo de la pesca de palangre demersal se asoció con una menor supervivencia de los adultos.81
En Española, el censo de 2007 contó 6045 parejas de Phoebastria irrorata, el 88,1 % de las 6857 de 2001.82 Según los autores, la muerte de adultos en la pesquería artesanal del Perú sigue siendo la explicación más convincente de esa caída, mientras que el plástico parece una amenaza menor: solo 3 de 43 aves muertas examinadas en 2007 (7,0 %) tenían alguno en el proventrículo.82
En San Cristóbal, en 2002 y 2003, solo el 23,6 % de los intentos de cría de Pterodroma phaeopygia tuvo éxito, y las ratas, que se llevaron huevos y pollos, causaron el 72,2 % de los fracasos.83 En las colonias de Ardenna creatopus, la presencia regular de gatos, ratas, conejos y ganado es una amenaza seria, y ni Mocha ni Robinson Crusoe tienen un sistema de bioseguridad.28 La población de Pterodroma neglecta en la isla Raoul estaba esencialmente extinta hacia 1966 por la depredación de gatos y ratas introducidos.84 En Pelecanoides garnotii, la extracción de guano retiró el sustrato donde excavaba sus nidos, y los guaneros y pescadores tomaban aves y huevos.8562
En tierra, la luz artificial es la amenaza mejor documentada en el Perú para Oceanodroma hornbyi: la iluminación intensa desorienta a las aves, puede cegarlas un momento y provocar choques con edificios, postes y vehículos, explica el SERFOR.86 Las áreas de cría de Oceanodroma markhami en el sector desértico del Cerro Lechuza, en la Reserva Nacional de Paracas, están dentro de una zona de protección estricta del Plan Maestro 2025-2030.87 De Puffinus griseus, las aves adultas halladas muertas en playas del norte de Nueva Zelanda entre 1961 y 1999 disminuyeron un 64,4 % y los volantones un 77,7 %.88
En Pterodroma phaeopygia las cifras tampoco coinciden: hubo estimaciones optimistas de hasta 100.000 parejas en Galápagos, y en 1991 los autores señalaron que investigaciones recientes apuntaban a unas 7500 parejas reproductoras como cifra más probable.89
Lo que aún no se sabe
La falta de información sobre las golondrinas de mar del Perú coloca a varias especies del grupo en categorías de amenaza en listas internacionales y nacionales.42 Oceanites gracilis figura como Datos Insuficientes en la UICN.90 El estudio del IMARPE la incluye entre las especies con sitios de cría comprobados en el Perú y remite a un trabajo de 2008, pero ese trabajo describe una colonia de otra especie, Oceanodroma tethys kelsalli, en la isla Santa.4291
Para Oceanodroma tethys kelsalli se conocían 800 parejas, frente a estimaciones en el mar de 1.258.700 y 1.451.800 aves de la subespecie, por lo que los autores piden más búsquedas de áreas de nidificación.91 En 2008 señalaban además que el Estado peruano no la protegía por falta de información.91 El acceso a las islas Desventuradas, donde cría Pterodroma defilippiana, está totalmente restringido por una base de la Armada de Chile, y no se ha hecho un estudio sistemático de sus aves desde la década de 1960.92
De Oceanodroma microsoma, el autor pide un monitoreo regular de las aves marinas de las aguas costeras para entender los movimientos de estas aves poco conocidas.41 Y de los varamientos de prions, la causa sigue sin conocerse en Chile y en el Perú.37
Las especies de este artículo
- Phoebastria irrorata
- Pterodroma phaeopygia
- Procellaria aequinoctialis
- Thalassarche salvini
- Procellaria parkinsoni
- Pelecanoides garnotii
- Thalassarche eremita
- Thalassarche bulleri
- Oceanodroma markhami
- Thalassarche melanophris
- Macronectes giganteus
- Macronectes halli
- Pterodroma defilippiana
- Pterodroma cookii
- Pterodroma externa
- Oceanodroma tethys
- Ardenna creatopus
- Oceanites gracilis
- Thalassarche chrysostoma
- Puffinus griseus
- Oceanodroma hornbyi
- Oceanites oceanicus
- Pelagodroma marina
- Pterodroma neglecta
- Daption capense
- Oceanodroma microsoma
- Pachyptila belcheri
- Puffinus bulleri
- Oceanodroma melania
- Fregetta grallaria
- Fulmarus glacialoides
Fuentes (92)
- WoRMS Editorial Board (2026). Phoebastria irrorata (Salvin, 1883). World Register of Marine Species. marinespecies.org
- WoRMS Editorial Board (2026). Pterodroma phaeopygia (Salvin, 1876). World Register of Marine Species. marinespecies.org
- Ayala, L.; Mendoza, C.; Perez, J. (2004). Two New Breeding Localities for Wedge-rumped Storm-petrel Oceanodroma Tethys Kelsalli in Peru. Marine Ornithology, 107-108. doi.org
- Thiers, L. et al. (2014). Foraging zones of the two sibling species of giant petrels in the Indian Ocean throughout the annual cycle: implication for their conservation. Marine Ecology Progress Series, 233-248. doi.org
- Spear, L.B.; Ainley, D.G. (2008). The Seabird Community of the Peru Current, 1980-1995, with Comparisons to Other Eastern Boundary Currents. Marine Ornithology, 125-144. doi.org
- Astete, M.; Gingins, R. (2020). Hallazgo del Paíño De Collar (Oceanodroma hornbyi) en el noroeste patagónico: una nueva especie para la avifauna argentina. Nuestras Aves, 92-93. doi.org
- Awkerman, J.A. et al. (2014). Small range and distinct distribution in a satellite breeding colony of the critically endangered Waved Albatross. Journal of Ornithology, 367-378. doi.org
- Dellacasa, R.F.; Chavez, L.N.; Tamini, L.L. (2022). Salvin's Albatross Thalassarche salvini Interacting with Freezer Trawlers in Waters of the Patagonian Shelf. Marine Ornithology, 99-102. doi.org
- Spear, L.B.; Ainley, D.G.; Webb, S.W. (2003). Distribution, abundance and behaviour of Buller’s, Chatham Island and Salvin's Albatrosses off Chile and Peru. Ibis, 253-269. doi.org
- Schweizer, M. et al. (2024). Genetic data confirm that Diomedea platei Reichenow, 1898, is the correct name for the population of Buller’s albatross Thalassarche bulleri breeding at the Chatham Islands, New Zealand. Notornis, 165-175. doi.org
- Frost, P.G.H. et al. (2018). Buller’s mollymawk (Thalassarche bulleri) on Rosemary Rock, Three Kings Islands, New Zealand. Notornis, 164-167. doi.org
- Quiñones, J.; Zavalaga, C.; Robertson, C.J.R. (2023). Identifying northern Buller´s albatross (Thalassarche bulleri subsp.) in offshore waters of southern Perú. Notornis, 49-59. doi.org
- Deppe, L. et al. (2014). Distribution and predictability of foraging areas in breeding Chatham albatrosses Thalassarche eremita in relation to environmental characteristics. Marine Ecology Progress Series, 287-301. doi.org
- Nicholls, D.G.; Robertson, C.J.R. (2007). Assessing flight characteristics for the Chatham albatross (Thalassarche eremita) from satellite tracking. Notornis, 168-179. doi.org
- Servicio Nacional de Áreas Naturales Protegidas por el Estado (SERNANP) (2024). Plan Maestro de la Reserva Nacional Dorsal de Nasca 2024-2029. SERNANP; aprobado por RP N.° 000040-2024-SERNANP. cdn.www.gob.pe
- Moreno, C.A.; Robertson, G. (2008). ¿Cuántos albatros de ceja negra, Thalassarche melanophrys (Temminck, 1828) anidan en Chile?. Anales del Instituto de la Patagonia, 89-92. doi.org
- Servicio Nacional Forestal y de Fauna Silvestre (SERFOR) (2018). Libro Rojo de la Fauna Silvestre Amenazada del Perú. SERFOR, Ministerio de Agricultura y Riego; documento en SINIA, Ministerio del Ambiente, 237. sinia.minam.gob.pe
- Kolesnikovas, C.K.M. et al. (2021). Unusual Mass Stranding Event of White-chinned Petrels Procellaria aequinoctialis in Santa Catarina State, Southern Brazil. Marine Ornithology, 183-187. doi.org
- Phillips, R.A. et al. (2006). Year-round distribution of white-chinned petrels from South Georgia: Relationships with oceanography and fisheries. Biological Conservation, 336-347. doi.org
- Imber, M.J. (1987). Breeding ecology and conservation of the black petrel (Procellaria parkinsoni). Notornis, 19-39. doi.org
- Pitman, R.L.; Ballance, L.T. (1992). Parkinson's Petrel Distribution and Foraging Ecology in the Eastern Pacific: Aspects of an Exclusive Feeding Relationship with Dolphins. The Condor, 825-835. doi.org
- Proaño, C.B. et al. (2026). Satellite tracking of Galapagos Petrel Pterodroma phaeopygia reveals distribution and movements during chick rearing. Marine Ornithology, 63-74. doi.org
- Rayner, M.J. et al. (2011). Contemporary and historical separation of transequatorial migration between genetically distinct seabird populations. Nature Communications, 2:332. doi.org
- Rayner, M.J. et al. (2008). Foraging ecology of the Cook's petrel Pterodroma cookii during the austral breeding season: a comparison of its two populations. Marine Ecology Progress Series, 271-284. doi.org
- Barbosa, C.B. et al. (2024). First record of Juan Fernández Petrel Pterodroma externa (Salvin, 1875) in Brazil. Papéis Avulsos de Zoologia, e202464037. doi.org
- Brooke, M. de L.; Clay, T.A. (2026). Dispersive migration of breeding Juan Fernández Petrels Pterodroma externa across the eastern Pacific Ocean and overlap with tropical tuna fisheries. Emu - Austral Ornithology, 133-146. doi.org
- Marín, M.; González, R.; Trucco, S. (2020). Population Status of the Kermadec Petrel (Pterodroma neglecta juana) at San Ambrosio Island, Chile. Marine Ornithology, 209-214. doi.org
- Carle, R.D. et al. (2021). Introduced and native vertebrates in pink-footed shearwater (Ardenna creatopus) breeding colonies in Chile. PLOS One, e0254416. doi.org
- Figueroa, J.; Suazo, E. (2012). Distribución de las aves marinas frente a la costa norte-centro del Perú en el invierno de 2010 y su interacción potencial con la pesquería. The Biologist (Lima), 41-71. doi.org
- Harper, P.C. (1983). Biology of the Buller’s shearwater (Puffinus bulleri) at the Poor Knights Islands, New Zealand. Notornis, 299-318. doi.org
- Marin, M. (2018). Breeding of Southern Giant Petrel Macronectes Giganteus in Southern Chile. Marine Ornithology, 57-60. doi.org
- Quiñones, J.; Romero, C.; Zavalaga, C. (2021). Vessel survey observations confirm wintering dispersion of northern giant-petrel (Macronectes halli) juveniles in southern-central Perú; what is their origin?. Notornis, 76-85. doi.org
- Ayala, L. (2007). Records of juvenile northern giant petrels (Macronectes halli) in Peruvian seas. Notornis, 234-236. doi.org
- Sagar, P.M. (1979). Breeding of the Cape pigeon (Daption capense) at the Snares Islands. Notornis 26(1), 23-36. doi.org
- Jackson, M.; Clarkin, E.; Ryan, C. (2025). The Biodiversity of Peter I Island—The Most Remote Island in the World. Ecology and Evolution 15, e71634. doi.org
- Quillfeldt, P. et al. (2017). Does genetic structure reflect differences in non-breeding movements? A case study in small, highly mobile seabirds. BMC Evolutionary Biology 17. doi.org
- Post, P.W. (2007). Observations of prion (Pachyptila) wrecks on the west coast of South America. Notornis 54(4), 220-225. doi.org
- Kammerichs-Berke, D. (2018). Northernmost record of the Wedge-rumped Storm-Petrel (Oceanodroma tethys). Western Birds, 74-76. doi.org
- Norambuena, H.V. et al. (2021). Living on the edge: genetic structure and geographic distribution in the threatened Markham’s Storm-Petrel (Hydrobates markhami). PeerJ, e12669. doi.org
- Gallardo, B. et al. (2023). Descubrimiento del primer sitio de reproducción de Golondrina de Mar Negra (Hydrobates markhami) en el extremo sur del Perú. El Hornero, 63-69. doi.org
- Ugarte, M. (2025). Status of the Least Storm Petrel Hydrobates microsoma in Peru. Marine Ornithology, 379-382. doi.org
- Romero, C. (2021). Distribución espacio-temporal de la golondrina de mar de Markham Oceanodroma markhami (Salvin, 1883) y la golondrina de mar acollarada O. hornbyi (Gray, 1854) en Perú. 2019. Boletín Instituto del Mar del Perú, 68-84. doi.org
- Pearman, M. (2000). Primeros registros del Paiño de Elliot (Oceanites gracilis) en la Argentina. El Hornero, 141-143. doi.org
- Howell, S.N.G. (2024). Wing-molt phenology in Wilson's, Fuegian, and Pincoya Storm Petrels, the Southern-breeding Oceanites oceanicus complex. Marine Ornithology, 229-233. doi.org
- Rayner, M.J. et al. (2017). The breeding biology of northern white-faced storm petrels (Pelagodroma marina maoriana) and results of an in-situ chick translocation. Notornis, 76-86. doi.org
- Flood, R.L. et al. (2021). Pelagic birds around Rapa and Marotiri, French Polynesia, October–December 2019, with notes on Rapa Shearwater Puffinus myrtae and Titan Storm Petrel Fregetta [grallaria] titan. Bulletin of the British Ornithologists' Club, 387-411. doi.org
- Fernández, C.E. et al. (2023). At-sea distribution patterns of the Peruvian diving petrel Pelecanoides garnotii during breeding and non-breeding seasons. Scientific Reports, 14463. doi.org
- Stucchi, M.; Mattos, J. (2011). CARACTERES OSTEOLÓGICOS CLAVE DEL POTOYUNCO PERUANO PELECANOIDES GARNOTII (PROCELLARIIFORMES, PELECANOIDIDAE). The Biologist (Lima), 53-65. doi.org
- Cristofari, R. et al. (2019). Unexpected population fragmentation in an endangered seabird: the case of the Peruvian diving-petrel. Scientific Reports, 2021. doi.org
- Seco Pon, J.P.; Weinecke, B.; Robertson, G. (2007). First record of Salvin’s albatross (Thalassarche salvini) on the Patagonian Shelf. Notornis, 49-51. doi.org
- Haase, B. (1994). A Chatham Island mollymawk off the Peruvian coast. Notornis, 50. doi.org
- Hall, A.J. (1987). The breeding biology of the white-chinned petrel Procellaria aequinoctialis at South Georgia. Journal of Zoology, 605-617. doi.org
- Miskelly, C.M. (2009). A very white-chinned petrel (Procellaria aequinoctialis) off Kaikoura. Notornis, 46-48. doi.org
- Cabezas, L.A. et al. (2012). The black petrel (Procellaria parkinsoni) in pelagic waters off northern Chile: a southern extension to the known distribution and interactions with the pelagic longline fishery. New Zealand Journal of Marine and Freshwater Research, 537-544. doi.org
- Spear, L.B.; Ainley, D.G.; Webb, S.W. (2005). Distribution, abundance, habitat use and behaviour of three Procellaria petrels off South America. Notornis, 88-105. doi.org
- Zavalaga, C.B. et al. (2009). Immature Northern Giant Petrels Macronectes Halli Visiting the Coast of Peru. Marine Ornithology, 237-240. doi.org
- Shaughnessy, P.D. (1970). The genetics of plumage phase dimorphism of the southern giant petrel Macronectes giganteus. Heredity, 501-506. doi.org
- Montenegro-Avila, M. et al. (2024). Record of Markham's Storm Petrel Hydrobates markhami in La Paz, Bolivia. Bulletin of the British Ornithologists’ Club, 39-41. doi.org
- Moreno, C.; Quiñones, J. (2022). Albatross and Petrel Interactions with an Artisanal Squid Fishery in Southern Peru during El Niño, 2015-2017. Marine Ornithology, 49-56. doi.org
- Quiñones, J. et al. (2021). Fine-Scale Distribution, Abundance, and Foraging Behavior of Salvin's, Buller's, and Chatham Albatrosses in the Northern Humboldt Upwelling System. Pacific Science, 85-105. doi.org
- Quiñones, J. et al. (2022). At-sea surveys reveal new insights of fine-scale distribution and foraging behaviour of Chatham albatrosses (Thalassarche eremita) in central southern Peru. Notornis, 72-78. doi.org
- Figueroa, J.; Suazo, E.; Santillán, L. (2011). REGISTROS ACTUALES E HISTÓRICOS DEL POTOYUNCO PERUANO PELECANOIDES GARNOTII (LESSON, 1828) (PROCELLARIIFORMES, PELECANOIDIDAE) EN EL PERÚ. The Biologist (Lima), 19-37. doi.org
- Zavalaga, C.B.; Jahncke, J. (1997). Maximum Dive Depths of the Peruvian Diving-Petrel. The Condor, 1002-1004. doi.org
- García-Godos, I.; Goya, E. (2006). Diet of Peruvian Diving Petrels Pelecanoides Garnotii on La Vieja Island, Central Peru, Between 1997 and 2000, Potential Fishery Interactions and Conservation Implications. Marine Ornithology, 33-41. doi.org
- Harris, M.P. (1973). THE BIOLOGY OF THE WAVED ALBATROSS DIOMEDEA IRRORATA OF HOOD ISLAND, GALAPAGOS. Ibis, 483-510. doi.org
- Sagar, P.M. et al. (2015). Population trends, timing of breeding and survival of Salvin’s albatrosses (Thalassarche salvini) at Proclamation Island, Bounty Islands, New Zealand. Notornis, 21-29. doi.org
- Tennyson, A.J.D.; Scofield, R.P.; Bell, B.D. (2003). Confirmation of Kermadec petrels breeding on the southern Kermadec Islands. Notornis, 236-237. doi.org
- BirdLife International (2018). Phoebastria irrorata: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22698320A132641638. doi.org
- BirdLife International (2018). Pterodroma phaeopygia: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22698020A132619647. doi.org
- Ministerio de Agricultura y Riego (2014). Decreto Supremo N.° 004-2014-MINAGRI: actualización de la lista de clasificación y categorización de las especies amenazadas de fauna silvestre legalmente protegidas. El Peruano (08-04-2014); ficha en SINIA, Ministerio del Ambiente. sinia.minam.gob.pe
- BirdLife International (2018). Thalassarche eremita: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22698393A132644476. doi.org
- BirdLife International (2018). Thalassarche melanophris: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22698375A132643647. doi.org
- BirdLife International (2020). Pelecanoides garnotii: BirdLife International. The IUCN Red List of Threatened Species 2020: e.T22698280A179971538. doi.org
- Convention on the Conservation of Migratory Species of Wild Animals (2026). Peruvian Diving Petrel Pelecanoides garnotii. CMS species page. cms.int
- BirdLife International (2018). Macronectes giganteus: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22697852A132608499. doi.org
- BirdLife International (2018). Macronectes halli: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22697859A132609000. doi.org
- BirdLife International (2018). Procellaria aequinoctialis: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22698140A132628887. doi.org
- BirdLife International (2018). Thalassarche salvini: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22698388A132644161. doi.org
- Barbraud, C. et al. (2008). Demographic response of a population of white-chinned petrels Procellaria aequinoctialis to climate and longline fishery bycatch. Journal of Applied Ecology, 1460-1467. doi.org
- Bell, E.A. (2016). Diving behaviour of black petrels (Procellaria parkinsoni) in New Zealand waters and its relevance to fisheries interaction. Notornis, 57-65. doi.org
- Pardo, D. et al. (2017). Additive effects of climate and fisheries drive ongoing declines in multiple albatross species. Proceedings of the National Academy of Sciences, E10829-E10837. doi.org
- Anderson, D.J. et al. (2008). Population status of the Critically Endangered waved albatross Phoebastria irrorata, 1999 to 2007. Endangered Species Research, 185-192. doi.org
- Cruz-Delgado, F.; González, J.A.; Wiedenfeld, D.A. (2010). Breeding biology of the Critically Endangered Galapagos Petrel Pterodroma phaeopygia on San Cristóbal Island: conservation and management implications. Bird Conservation International, 306-319. doi.org
- Veitch, C.R.; Harper, G. (1998). Breeding season of Kermadec petrels (Pterodroma neglecta neglecta) at Meyer Islands, Kermadec Group, New Zealand. Notornis, 67-69. doi.org
- Figueroa, J.; Stucchi, M. (2008). Peruvian Diving-petrels Pelecanoides Garnotii on Lobos De Afuera Islands, Peru. Marine Ornithology, 189-190. doi.org
- SERFOR (2025). SERFOR rescata a golondrina de mar encontrada en urbanización de Tacna. Nota de prensa, Servicio Nacional Forestal y de Fauna Silvestre (3 de abril de 2025). gob.pe
- Servicio Nacional de Áreas Naturales Protegidas por el Estado (2025). Plan Maestro de la Reserva Nacional de Paracas 2025-2030. Anexo de la Resolución de Presidencia Ejecutiva N.° 000173-2025-SERNANP/PE, 52-53. cdn.www.gob.pe
- Scofield, R.P.; Christie, D. (2002). Beach patrol records indicate a substantial decline in sooty shearwater (Puffinus griseus) numbers. Notornis, 158-165. doi.org
- Tomkins, R.J.; Milne, B.J. (1991). Differences among dark-rumped petrel (Pterodroma phaeopygia) populations within the Galapagos archipelago. Notornis, 1-35. doi.org
- BirdLife International (2018). Oceanites gracilis: BirdLife International. The IUCN Red List of Threatened Species 2018: e.T22698442A132647135. doi.org
- Ayala, L. et al. (2008). Una colonia reproductiva de la Golondrina de la Tempestad Peruana, Oceanodroma tethys kelsalli (Lowe 1925), en la Isla Santa, Perú. Revista Peruana de Biología, 117-120. doi.org
- Flores, M.A.; Schlatter, R.P.; Hucke-Gaete, R. (2014). Seabirds of Easter Island, Salas y Gomez Island and Desventuradas Islands, southeastern Pacific Ocean. Latin American Journal of Aquatic Research, 752-759. doi.org